- 移动端

武汉枢密脑科学技术有限公司品牌商
8 年
手机商铺
- NaN
- 0.6000000000000001
- 1.6
- 0.6000000000000001
- 3.6
武汉枢密脑科学技术有限公司
入驻年限:8 年
- 联系人:
枢先生
- 所在地区:
湖北 武汉市 江夏区
- 业务范围:
抗体、试剂、细胞库 / 细胞培养、技术服务、耗材、实验室仪器 / 设备
- 经营模式:
生产厂商 经销商
推荐产品
公司新闻/正文
IF=16.9【客户文章】Neuron︱动机为何逐渐减退?复旦李伟广/上交大宋璐/刘振国团队合作揭示慢性痛中努力持续性受损的阶段性环路机制
16 人阅读发布时间:2026-11-13 17:11
撰文︱许文英,孙九阳
审阅︱李伟广
学习一项技能、完成一项工作或参加康复训练,既需要开始行动的动力,也需要持续付出努力。动机贯穿其中,影响我们愿意投入多少、坚持多久。大脑结合身体状态、外部环境和既往经验,权衡行动的收益与代价,调节努力投入[1-3]。在抑郁症、精神分裂症、帕金森病和脑卒中等疾病中,动机减退常使患者难以开始或坚持日常活动,影响生活与康复。有些患者仍能从奖赏中感到快乐,却难以为获得奖赏而持续行动。
慢性疼痛患者也常面临这样的困难。急性疼痛时,减少体力活动、回避风险有助于保护受伤组织;但当疼痛长期持续,患者还可能受到疲乏、活动减少和抑郁等问题的困扰[4, 5],原本具有保护意义的行为调整也可能妨碍工作、社交与康复。那么,随着疼痛迁延不愈,支撑行动与坚持的动力究竟是如何一步步减退的?理解这一变化,有助于将干预目标从减轻疼痛,进一步拓展到恢复患者主动参与和持续行动的能力。
既往动物研究发现,慢性疼痛可通过长时程抑制(LTD)削弱奖赏环路中伏隔核神经元的兴奋性突触传递,降低动物为食物奖赏持续付出努力的程度,而自由摄食和蔗糖偏好仍可保留;即便短暂缓解痛觉超敏,努力行为也未能同步恢复[6]。这些发现提示,持续疼痛经历引起的神经可塑性变化,可能对动机产生较为持久的影响。前扣带回皮层(anterior cingulate cortex,ACC)参与疼痛加工、成本收益评估和目标导向行为[7-10],是研究这一过程的重要切入点。神经损伤后,早期感觉异常与后期动机减退是否涉及同一群ACC神经元?不同输出通路的作用如何随病程改变?回答这些问题,需要沿着疼痛发展的进程,追踪不同神经元集群及其连接如何调节持续努力。
2026年10月9日,复旦大学脑科学转化研究院李伟广教授团队联合上海交通大学医学院附属新华医院神经内科宋璐、刘振国主任医师团队,在《Neuron》期刊在线发表题为“Stepwise engagement of cingulate ensembles underlies motivational decline in chronic pain”的研究论文[11]。复旦大学脑科学转化研究院博士后许文英和上海交通大学医学院附属新华医院博士生孙九阳为论文共同第一作者。该研究基于雄性小鼠神经病理性疼痛模型,结合行为学分期、活动依赖性标记、投射特异性操控、在体记录和离体脑片电生理,揭示了ACC中不同神经元集群分阶段参与感觉异常与努力持续性受损的环路机制。其中,丘脑前内侧核(AM)输入优先作用于投射至基底外侧杏仁核(BLA)的ACC神经元,相关通路参与早期机械性超敏,并影响后续努力行为;ACC投射至外侧缰核(LHb)的通路则在后期出现持续努力相关编码的改变,并介导努力持续性受损。ACC–BLA–ACC回返环路(recurrent circuit)中的信号传递,为早期疼痛相关活动影响后期ACC功能提供了一条候选途径。这些发现将慢性疼痛的感觉异常与动机减退纳入同一时间框架,为理解持续疼痛经历如何逐步影响行动与坚持提供了新的环路依据。
一、神经损伤后感觉异常先出现,持续努力的减退随后显现
研究团队首先训练小鼠通过鼻戳触摸屏上的目标获取食物奖赏,任务由固定比率(fixed ratio,FR)逐步过渡到渐进比率(progressive ratio, PR)。在PR任务中,每获得一次奖赏,下一次所需的鼻戳次数便进一步增加[12]。获得的奖赏数量、鼻戳总数,以及断点——实际完成的最高反应要求,共同反映小鼠在努力成本不断上升时持续投入的表现。
完成训练后,研究团队建立保留神经损伤(spared nerve injury, SNI)模型,并设置假手术(Sham)对照。损伤后第1天,小鼠即出现机械性超敏,较轻的刺激便更容易引发缩足反应。术后第1–3天,两组PR任务表现均短暂下降,但SNI组未出现额外减退;到第7–9天,SNI组的奖赏数量、鼻戳总数和断点显著低于Sham组,这一差异持续至第14–16天(图1)。感觉异常先于可检测的持续努力损害出现,为追踪两者之间的环路联系提供了时间框架。
与行为变化相伴,脑内活动的分布也随病程改变。研究利用FosTRAP2 × Ai14小鼠,标记损伤后第1天在机械刺激下活跃的神经元,再于第7天结合c-Fos染色,观察哪些脑区被激活,以及早期标记的神经元是否再次参与。实验采用0.07 g的von Frey纤维作为SNI后可诱发明显缩足反应的轻触刺激,以0.008 g的阈下刺激作对照。
结果显示,早期活动标记的增加主要见于基底外侧杏仁核(BLA)和丘脑前内侧核(AM)等区域;第7天,前扣带回皮层(ACC)和外侧缰核(LHb)的刺激相关活动则更为突出。与阈下刺激相比,0.07 g刺激还提高了ACC、LHb等脑区早期标记神经元的再激活比例,而BLA未见同样变化。这一结果表明,不同脑区在慢性疼痛的不同阶段被差异性招募:BLA在早期阶段被优先激活,而ACC和LHb的持续参与则与后期情感动机相关功能损害更为相关。
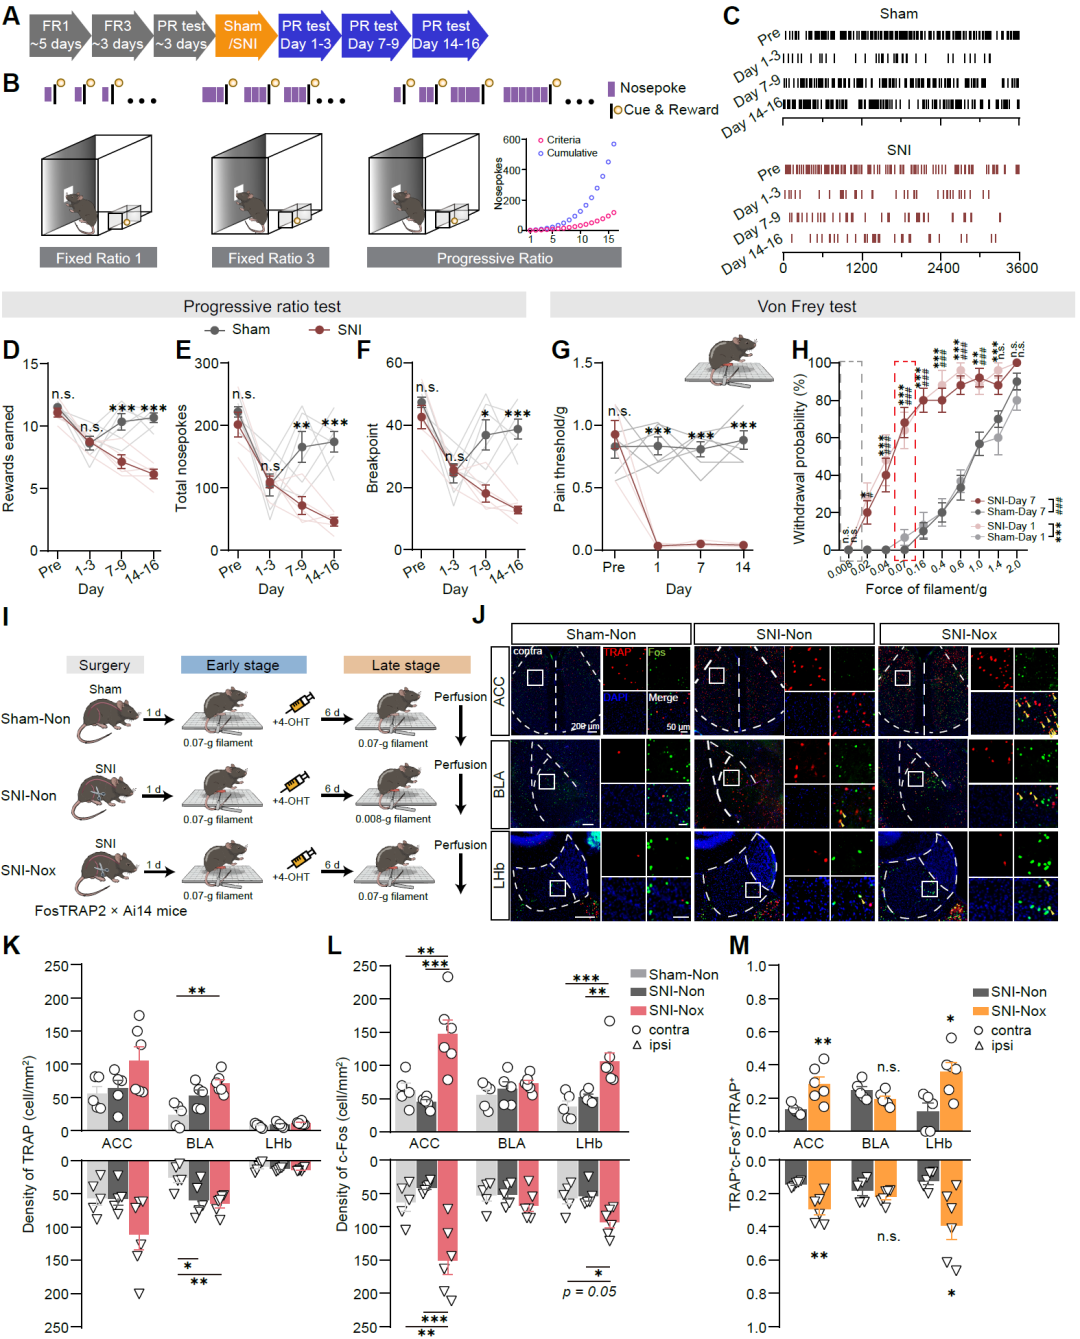
图1. 感觉超敏先于持续努力减退出现,并伴随不同阶段的脑区活动变化。
(图源:Xu, Sun, et al., Neuron, 2026)
二、同一ACC内,早晚期活动集群的作用不同
沿着全脑活动图谱提供的线索,研究进一步聚焦ACC。研究团队利用活动依赖性标记[13, 14]与化学遗传学,分别在损伤后第1天或第7天标记机械刺激相关的ACC神经元集群(ACCNox),随后检验抑制这些集群对行为的影响。
对第1天标记的集群,从第4天起进行抑制,可以提高机械缩足阈值,却未改善PR任务表现;对第7天标记的集群,从第8天起进行抑制,则同时改善了机械性超敏和努力行为。作为对照,抑制阈下刺激标记的ACC集群,对上述行为均无显著影响(图2A–H)。
这些功能差异也体现在连接上。神经环路示踪发现,早期标记集群接受来自AM等丘脑核团的相对输入更多,输出偏向BLA;晚期标记集群接受来自初级躯体感觉皮层(S1)和视觉皮层的相对输入更多,输出则偏向LHb(图2I–S)。同一ACC脑区内,不同时期活跃的神经元集群,在连接和行为作用上各有侧重。
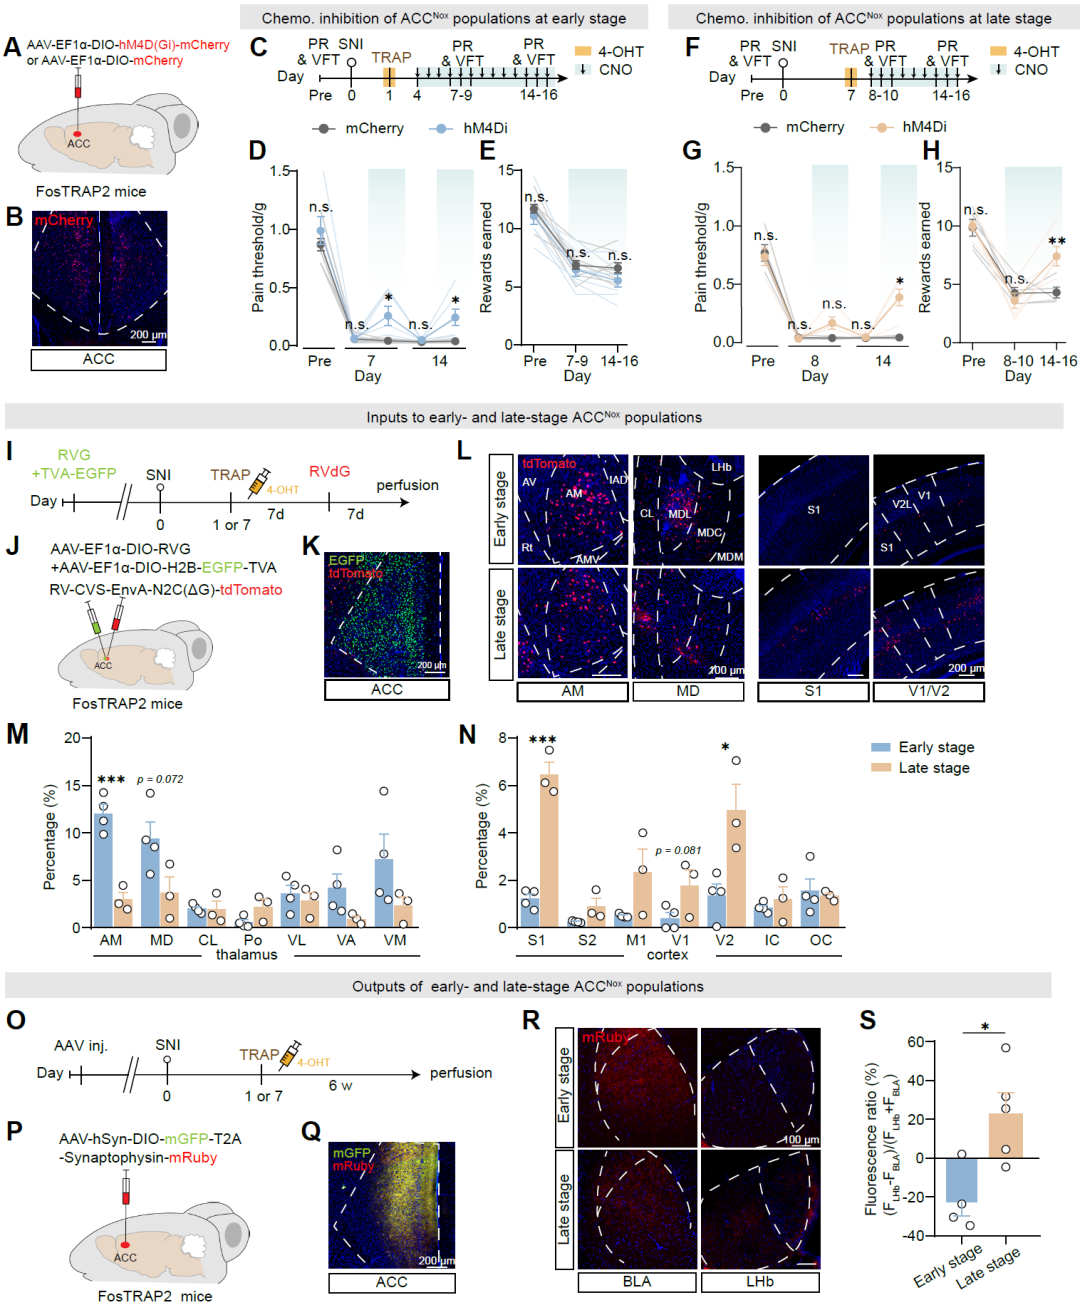
图2. 早晚期活动标记的ACC神经元集群具有不同的行为作用与连接偏好。
(图源:Xu, Sun, et al., Neuron, 2026)
三、投射到不同靶区的ACC神经元,参与时序也不同
根据上述连接差异,研究团队进一步比较了ACC→BLA和ACC→LHb两类投射神经元。双重逆行示踪显示,两类神经元在ACC内大体分离、重叠较少,头尾侧和内外侧分布也有所不同。两者均包含较多第5层神经元,其中ACC→LHb群体中Rbp4-Cre标记的神经元比例更高(图3A–J)。
在相同机械刺激下,两条通路呈现不同的阶段性活动。与Sham组相比,SNI组ACC→BLA神经元的c-Fos阳性比例在第1天显著增加,到第7天则不再有显著组间差异;ACC→LHb神经元在第1天未见组间差异,到第7天才表现出明显增加(图3K–R)。解剖分布与活动时序的差异,共同支持这两条ACC输出通路在疼痛进程中具有不同的参与偏向。
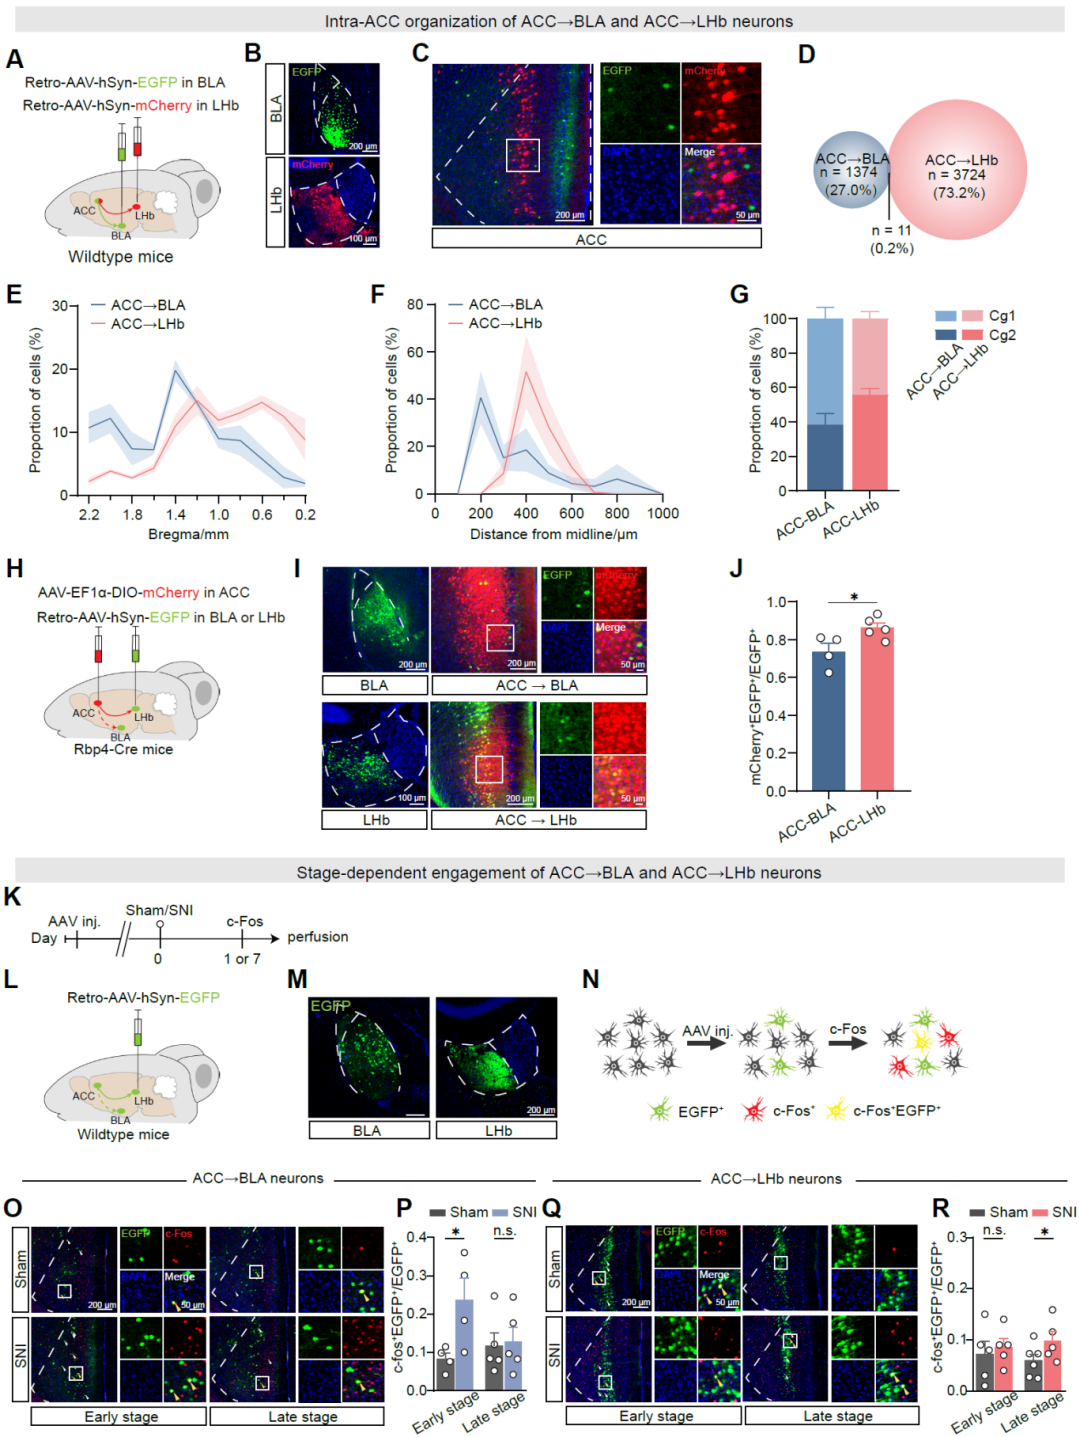
图3. ACC→BLA与ACC→LHb神经元在解剖上相对分离,并呈现不同的阶段性活动。
(图源:Xu, Sun, et al., Neuron, 2026)
四、从轻触反应到任务进程,两条通路表征不同信息
为检测两条通路在行为过程中的实时活动,研究团队利用光纤记录,分别追踪机械刺激和PR任务中的群体钙信号。
SNI后第1天,ACC→BLA神经元对0.07 g轻触刺激的钙反应明显增强,后期仍可检测到;ACC→LHb则没有出现类似的纵向增强。随机森林解码分析显示,ACC→BLA信号在损伤后第1天和第7天能够区分刺激与非刺激时段,到第14天不再表现出这一能力;ACC→LHb信号在所测阶段均未表现出相同的区分能力。
PR任务中的差异则体现在持续努力的过程。两条通路都会随鼻戳等事件发生活动变化,但在损伤前和假手术后,ACC→LHb的鼻戳相关活动还会随着任务进程逼近停止反应的临界点(鼻戳-断点比趋近100%)而增强。SNI后,这种与任务进程的关联不再明显,ACC→BLA也未表现出对应关系。进一步解码发现,损伤前的ACC→LHb信号可以区分高、低鼻戳频率时段,而这一能力在SNI后减弱至不再高于随机对照(图4A–L)。
与此同时,同步记录的伏隔核(NAc)多巴胺信号,在SNI后仍保留可检测的任务相关信息。持续努力相关的ACC→LHb编码随疼痛进程发生变化时,部分奖赏相关信号仍然存在(图4M–T)。这将动机减退的问题进一步指向大脑如何利用这些信息来调节持续行动。
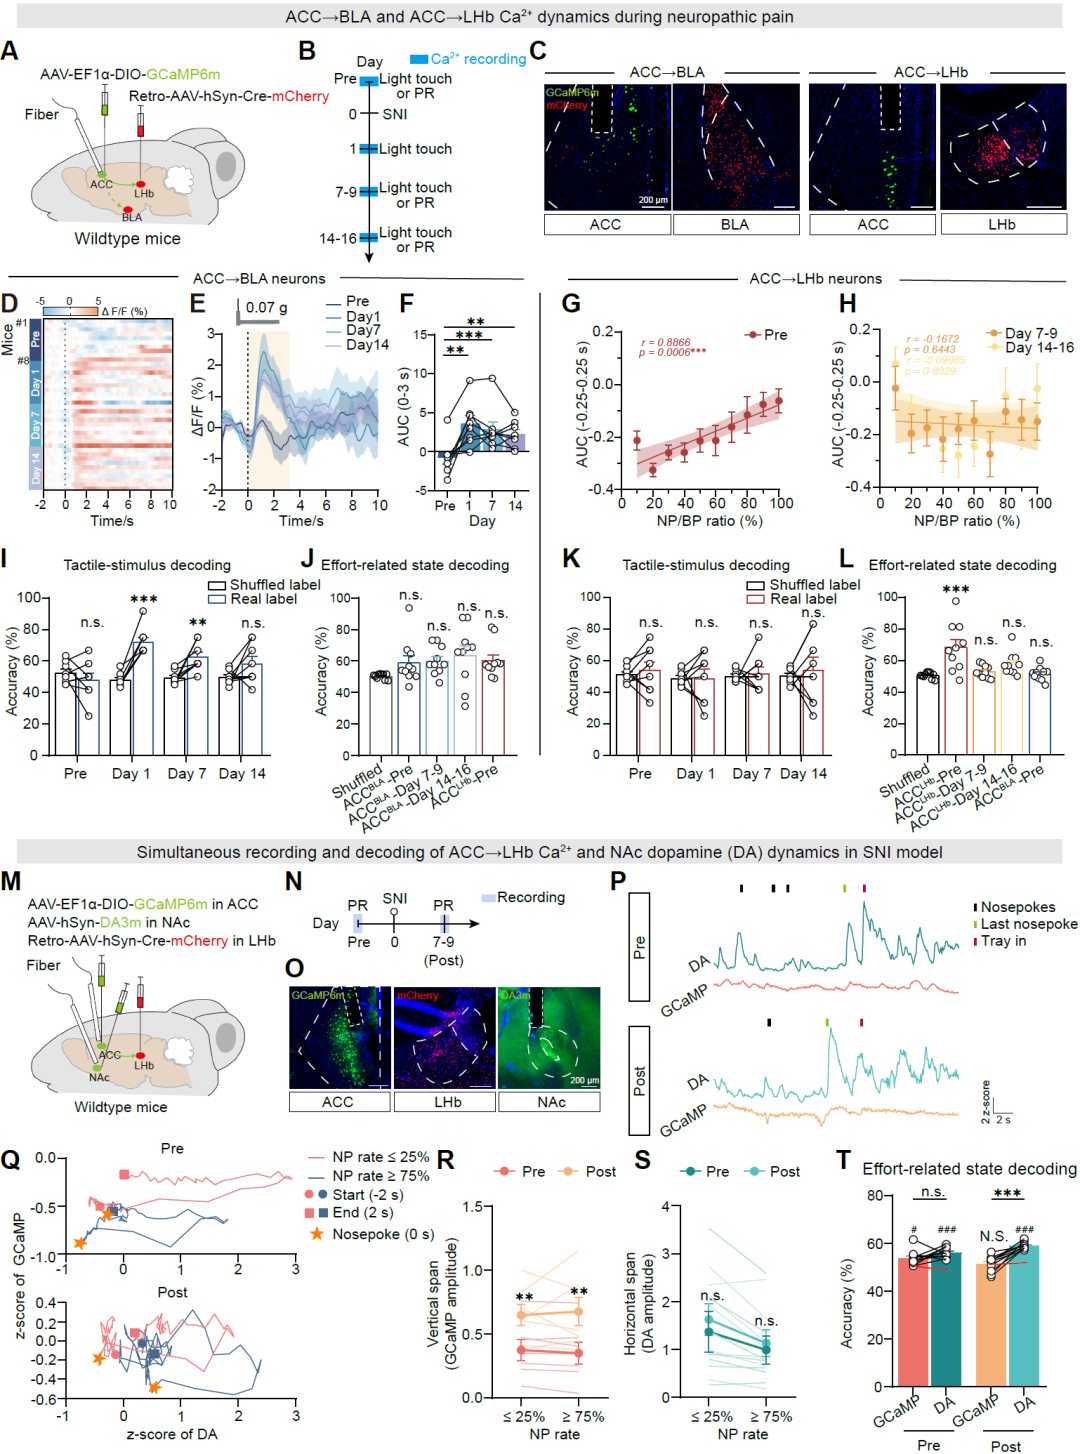
图4. ACC→BLA活动偏重感觉刺激相关信息,ACC→LHb活动则与努力行为及任务进程相关。
(图源:Xu, Sun, et al., Neuron, 2026)
五、单单位电生理记录区分即时反应与持续努力
群体信号的变化,来自哪些神经元的活动?研究团队结合光遗传标记与单单位(single-unit)在体电生理,在小鼠执行PR任务时识别并记录ACC→LHb神经元。根据鼻戳前后的放电变化,将其分为鼻戳反应型(nosepoke-responsive, NP-R)和鼻戳非反应型(nosepoke-nonresponsive, NP-nR)两类功能神经元群体。损伤前,NP-nR神经元的活动随任务推进逐渐升高,NP-R神经元则呈相反趋势;SNI后,两类群体与任务进程的关联均不再明显。相比之下,NP-R神经元在高鼻戳频率时段的放电低于低频率时段,这种与即时反应强度相关的活动差异,在SNI后仍然保留。由此,ACC→LHb内部呈现出不同时间尺度的活动特征:一部分与当下反应的强弱相关,另一部分随整个任务进程缓慢变化(图5)。慢性疼痛对后者的影响更为突出,说明即时作出反应与持续付出努力,可以对应不同的神经编码变化。
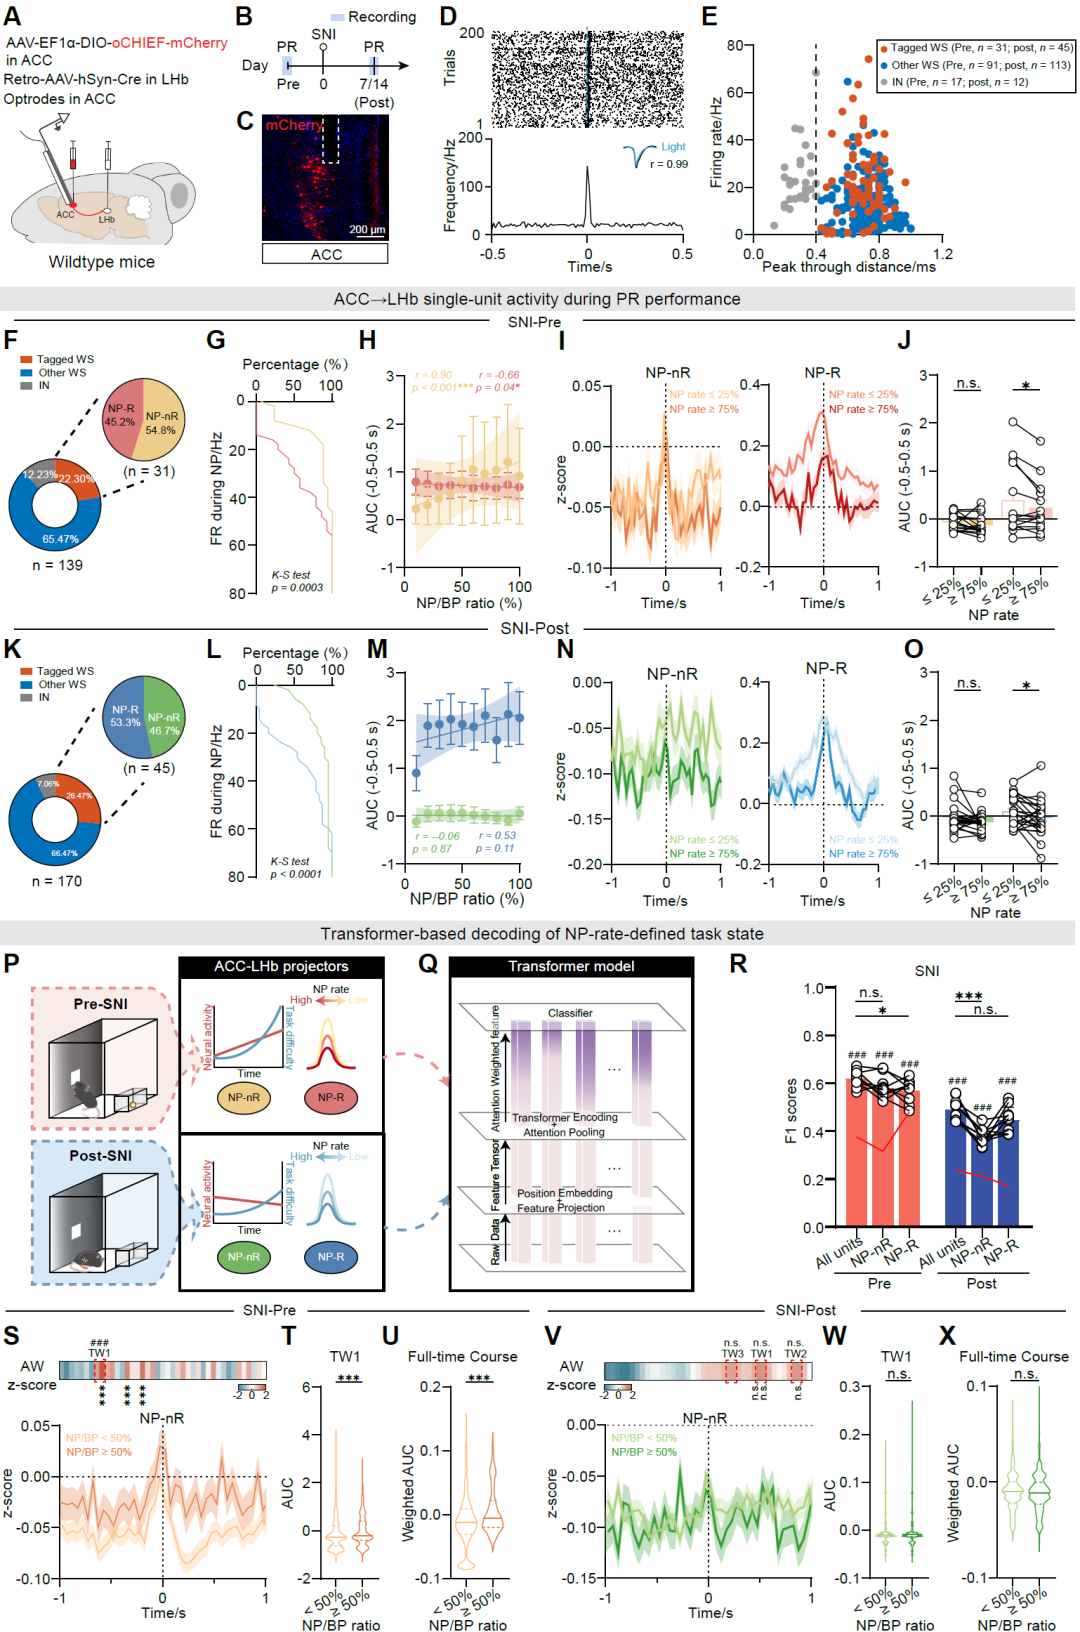
图5. 两种互补的ACC→LHb功能类别代表不同时间尺度的基于努力的动机特征。
(图源:Xu, Sun, et al., Neuron, 2026)
六、通路选择、干预时机与调节方式,共同决定行为结果
为检验ACC→LHb活动是否直接影响持续努力,研究团队采用动作触发的闭环光遗传抑制:小鼠每完成一次鼻戳,就触发1秒的光抑制。干预期间,SNI小鼠获得的奖赏增加;撤去光照后,表现回到接近干预前的水平。同样的操作未提高Sham小鼠的PR表现,也未缓解机械性超敏。
化学遗传学实验进一步显示,从损伤后第4天起,每天给予氯氮平-N-氧化物(CNO)抑制ACC→LHb神经元,可以改善奖赏数量、鼻戳总数和断点,而机械缩足阈值不变;仅在测试当天给药,则未产生相同改善。持续阻断这条通路的突触输出,也呈现出努力行为改善与感觉超敏缓解相分离的效果(图6A–Q)。由此可见,针对动作发生时的短暂干预和连续多日的通路抑制,都能改善持续努力,但不同调节方式的效果并不相同。
ACC→BLA通路则表现出另一种时间特征。从损伤当天开始持续抑制这条通路,可以减轻机械性超敏,并改善后期PR表现;若从第4天才开始抑制,则只改善机械缩足阈值,未显著改善PR表现(图6R–Y)。这表明,早期ACC→BLA活动对后续努力行为具有影响,其作用不局限于当下的感觉超敏。
对上游输入的分析进一步发现,AM输入在ACC→BLA神经元上诱发的兴奋性突触反应,强于ACC→LHb神经元,并伴随较低的配对脉冲比率。从损伤起抑制接受AM输入、同时投射至BLA的ACC神经元,也能改善机械性超敏和后期PR表现。这些结果将AM→ACC→BLA通路纳入了连接早期感觉异常与后续行为变化的环路框架。
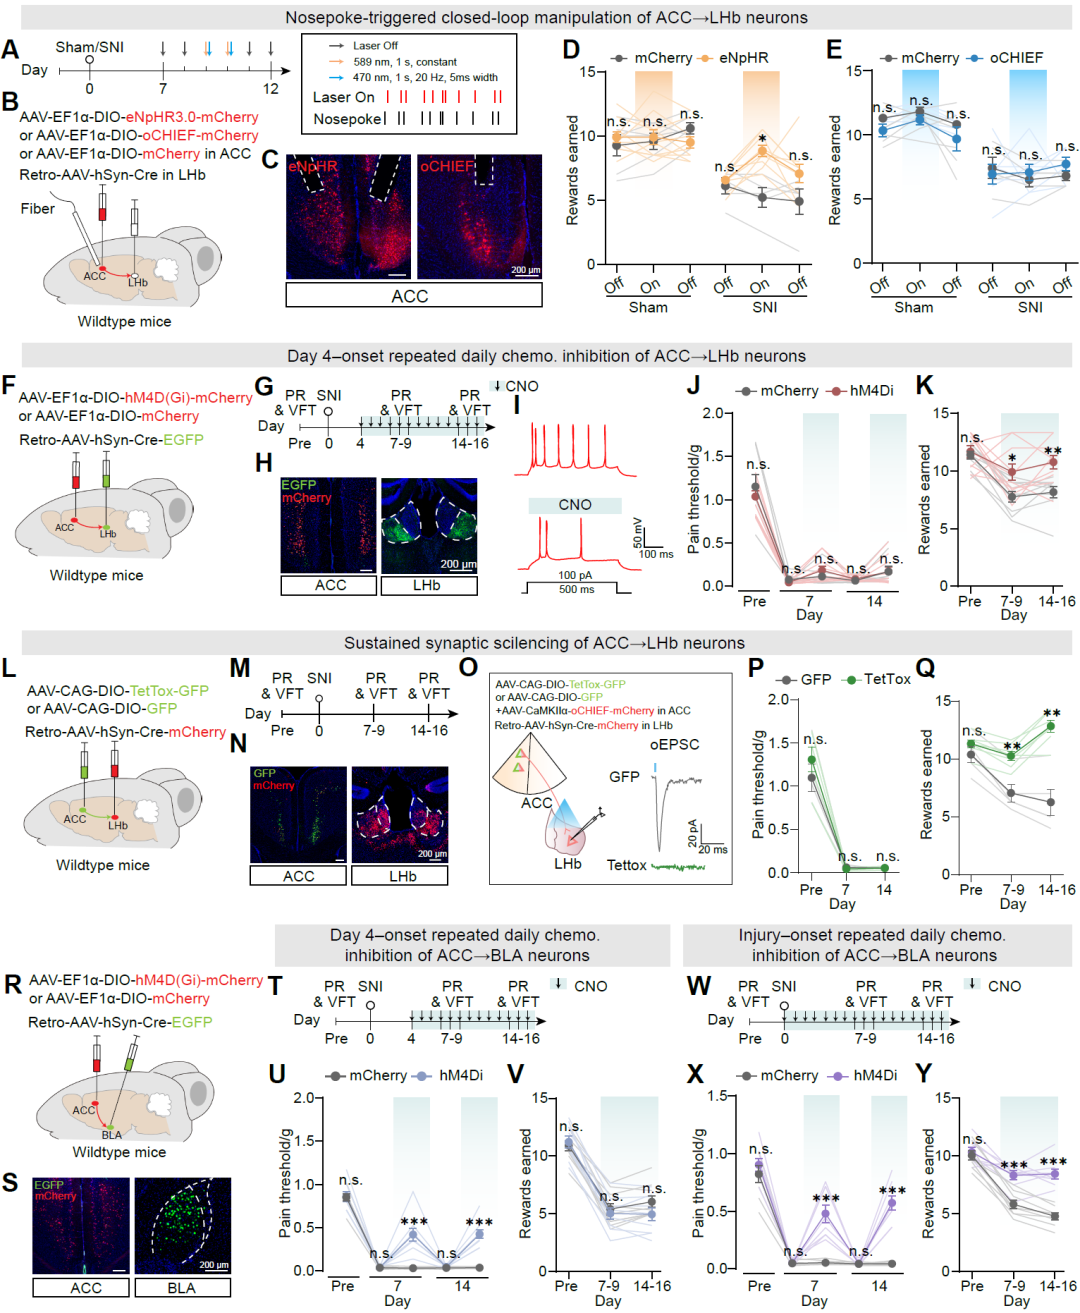
图6. ACC→LHb和ACC→BLA通路在机械性痛觉过敏和基于努力的动机行为中发挥不同功能。
(图源:Xu, Sun, et al., Neuron, 2026)
七、皮层与杏仁核的回返连接,提供跨阶段影响的候选途径
早期ACC→BLA活动如何影响后期ACC网络?研究进一步考察了ACC与BLA之间的回返连接。脑片电生理记录显示,刺激ACC轴突末梢时,投射回ACC的BLA神经元表现出比邻近未标记神经元更强的兴奋性突触反应,并具有较低的配对脉冲比率。返回ACC的BLA输入,则能够影响ACC→BLA和ACC→LHb等不同输出群体(图7A–K)。这些连接构成了一条ACC→BLA→ACC回返环路,使离开皮层的信号能够经杏仁核返回,并影响多个ACC输出细胞群。
在体光纤记录也发现,SNI后第7天刺激ACC在BLA内的轴突末梢,可引起ACC→LHb神经元钙活动的小幅、延迟增加,而直接刺激ACC→BLA神经元胞体则产生相反效果。这提示,两条输出之间的相互影响,与所激活的局部和远程连接有关。
为检验回返连接的行为作用,研究团队在ACC→BLA神经元中表达抑制性受体hM4Di,并在BLA→ACC神经元中表达兴奋性受体hM3Dq或对照荧光蛋白。自损伤起向ACC局部输注CNO后,对照组的机械性超敏和PR表现得到改善;同时作用于表达hM3Dq的BLA→ACC末梢,则抵消了这些益处(图7L-Q)。另一方面,单独抑制BLA→ACC通路虽能改善机械缩足阈值,却未改善PR表现(补充图S19),显示回返信号的行为作用与其他通路的活动状态有关。综合连接、记录和干预结果,ACC–BLA–ACC回返环路为早期疼痛相关活动影响后期ACC功能,提供了一条候选途径。
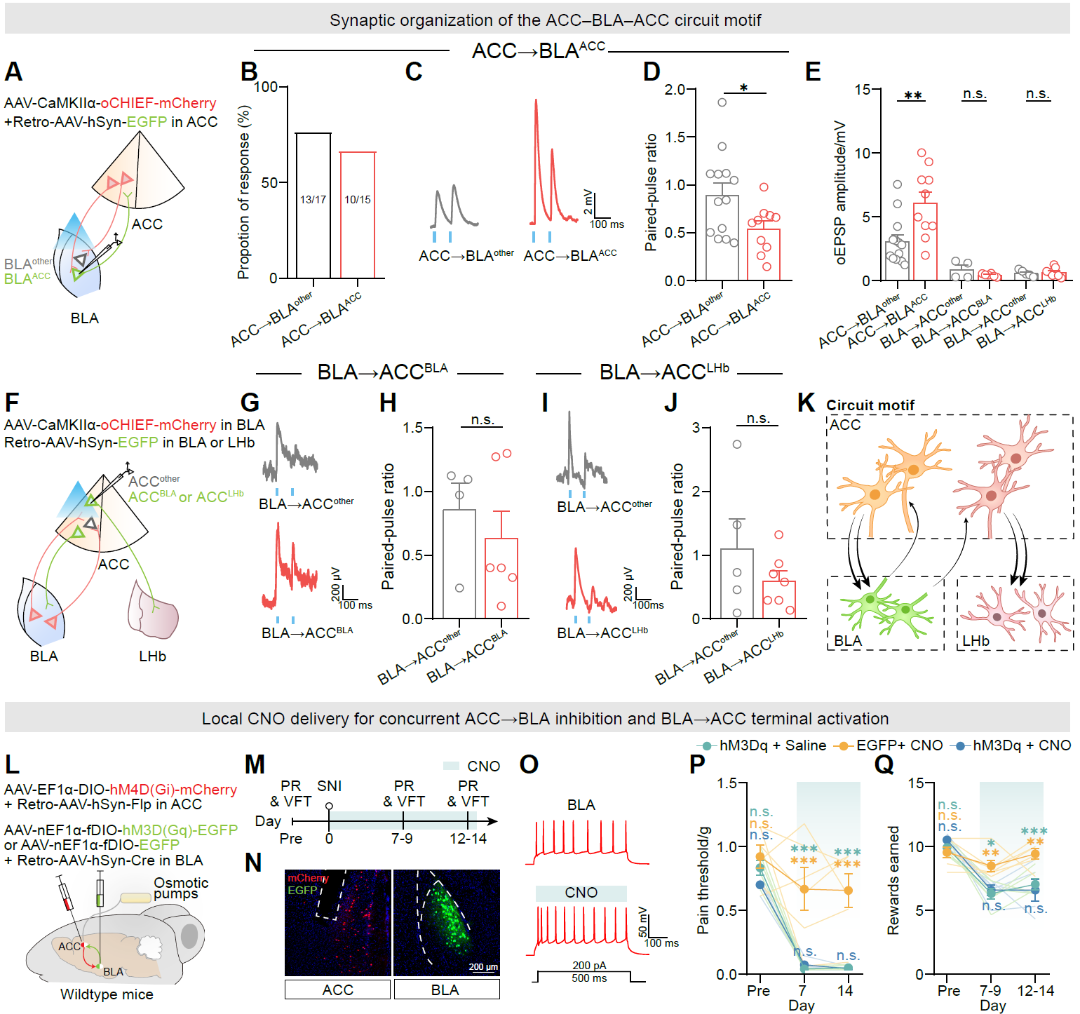
图7. ACC-BLA-ACC回返环路为早期伤害性信号传导至后期ACC→LHb功能障碍提供候选途径。
(图源:Xu, Sun, et al., Neuron, 2026)
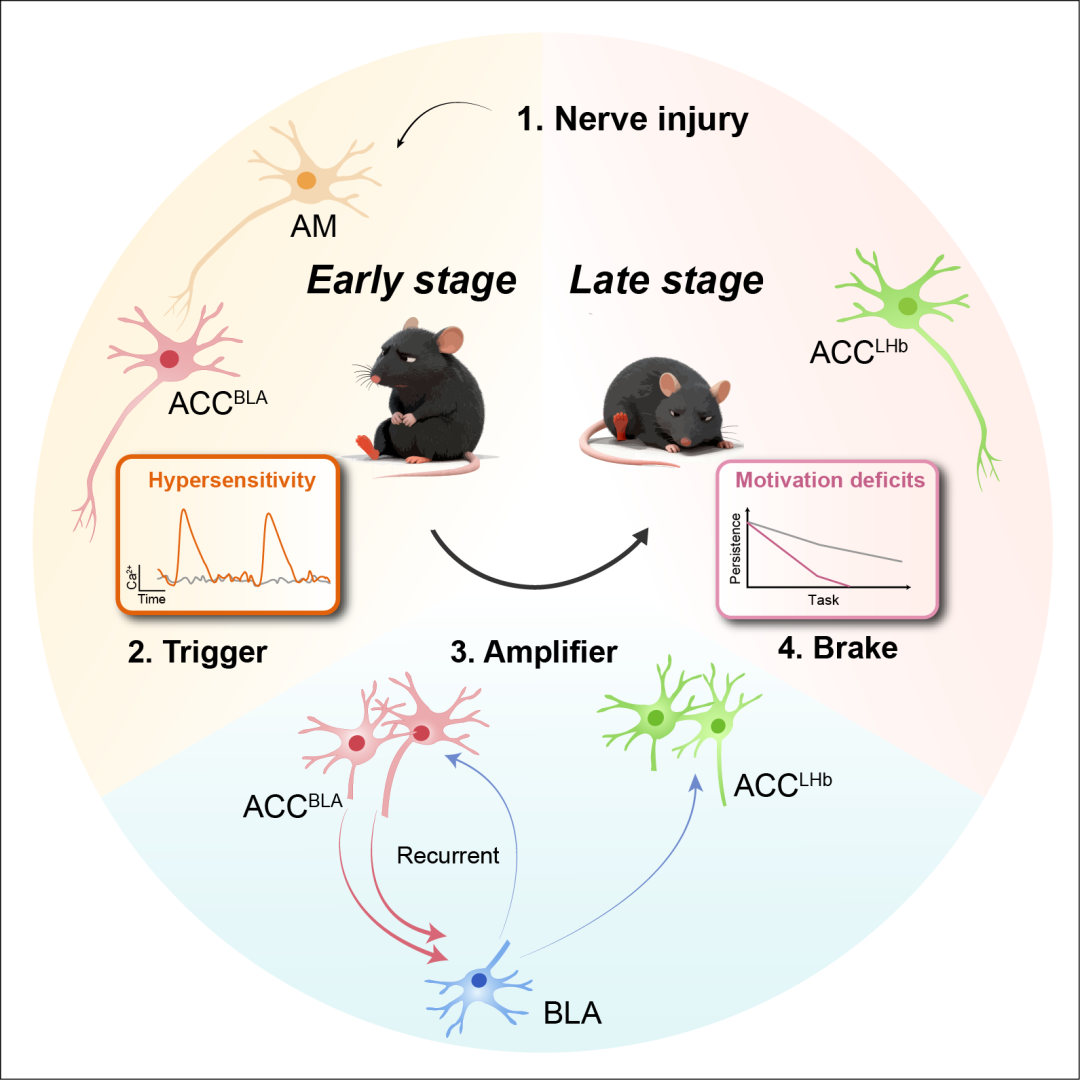 图8. 工作模式图:慢性疼痛中前扣带回皮层环路的阶段性参与机制。
(图源:Xu, Sun, et al., Neuron, 2026)
总结
本研究在小鼠神经病理性疼痛模型中,将早期感觉异常与后期努力持续性受损纳入同一时间框架,揭示了ACC不同神经元集群及其输出通路的阶段性作用。ACC→BLA通路参与早期机械性超敏,并影响后续努力行为;ACC→LHb通路则在后期出现持续努力相关编码的改变,并参与动机减退。ACC–BLA–ACC回返连接为早期疼痛相关活动影响后期ACC功能提供了一条候选途径(图8)。这些发现将慢性疼痛的感觉与动机后果联系起来,也解释了疼痛持续过程中,感觉超敏与动机减退两类症状为何在不同阶段先后出现、由不同环路分别承接,为精准干预提供了时间窗口与靶点依据。
这项工作进一步关注了持续的疼痛经历如何逐步改变大脑对行动的调节。不同神经元集群的功能贡献会随病程发生变化,早期环路活动的影响也可能延续到后续行为。因此,理解动机减退,既需要考察当下的感觉状态,也需要追踪此前经历所伴随的神经活动及其后续影响。研究中,持续努力相关编码发生改变时,部分奖赏相关反应仍可被检测到。这为区分“对奖赏作出反应”与“为获得奖赏而持续付出努力”提供了神经环路层面的线索,也提示动机研究需要更加重视行动在整个任务过程中如何得到维持。
干预实验则表明,减轻感觉超敏与改善持续努力可以相互分离,效果还与介入时机和调节方式有关。早期ACC→BLA干预对后续努力行为的影响,为探索动机损害形成前的干预窗口提供了依据;针对ACC→LHb的调节能够改善后期努力表现,则显示已经出现的功能损害仍具有可干预性。这些结果提示,后续研究应将干预对象、病程阶段与行为目标结合起来考虑,分别检验哪些策略有助于减轻感觉异常,哪些策略能够促进持续行动,以及两者如何配合。
动机减退的研究意义也超出慢性疼痛本身。在抑郁症、精神分裂症、帕金森病和脑卒中等疾病中,难以主动参与或持续投入,都会影响患者的独立生活、社会交往与康复。以持续努力这一具体行为维度为切入点,沿病程比较不同疾病中的神经元集群活动及其连接变化,有望帮助识别动机减退的共同环节与疾病特异性机制。对于患者而言,症状减轻是恢复的重要一步,重新投入生活同样不可缺少。从愿意开始行动,到能够持续付出努力,动机的恢复应成为连接症状改善与生活功能重建的重要研究目标。
通讯作者简介
李伟广,复旦大学特聘教授,脑科学转化研究院课题组长,博士生导师。国家万人计划青年拔尖人才,上海领军人才,上海市优秀学术带头人,上海市卫生健康学科带头人获得者。致力于解析记忆形成、更新与行为调控的神经机制,揭示记忆异常驱动脑疾病演变的规律,发展基于记忆原理的精准干预策略。研究成果多次以通讯(含共同)作者在Nature Neuroscience、Neuron、Journal of Clinical Investigation、National Science Review、Nature Communications、Molecular Psychiatry等学术期刊上发表。论文被引累积超过2600余次,2次被Faculty Opinions给予“Exceptional”最高评价。现任中国神经科学学会离子通道与受体分会委员、学习记忆基础与临床分会委员,中国生理学会转化神经科学专业委员会委员,上海市神经科学学会青年创新工作委员会执行委员、神经免疫分会委员、肿瘤神经科学分会委员,国际学术期刊Journal of Physiology、Discover Neuroscience等的编委。
宋璐,上海交通大学医学院附属新华医院神经内科主任医师、硕士生导师。上海市医学会神经内科专科分会委员;中国医师协会医学遗传医师分会委员;中国健康管理协会神经调控全程管理分会会员,上海市浦江人才计划获得者。主持国家自然科学基金项目3项,研究成果发表于Movement Disorders、NPJ Parkinson’s Disease、Arteriosclerosis Thrombosis and Vascular Biology等国际知名学术期刊。
刘振国,上海交通大学医学院附属新华医院神经内科主任医师,二级教授,上海交通大学医学院神经病学博士生导师、上海中医药大学中西医结合专业博士生导师;国家科技部重点研发计划项目首席专家,上海市优秀学科带头人;上海市级劳模,上海医务工匠。“帕金森病中西医结合诊疗一站式诊治中心”及“神经退行性疾病劳模工作室”负责人。历任中华医学会神经病学分会委员、帕金森病及运动障碍学组委员、脑电图与癫痫专业组委员;上海医学会神经病学分会副主委,兼帕金森病及运动障碍学组组长;上海医师协会神经内科分会副会长等。现任中国医师协会神经内科分会委员、帕金森病及运动障碍学组委员;中国卒中学会理事,兼全科专委会副主委;上海中西医结合学会慢性神经系统疾病专委会主委等。主持国家及上海市科委项目等35项,其中包括国家重点研发计划项目1项,国家自然基金7项。发表第一或通讯作者论文300余篇,其中SCI 80多篇。以第一完成人获省部级奖项9项,其中包括中国医院协会医院科技创新一等奖、上海市科技进步二等奖。牵头完成有关帕金森病中西医结合诊治行业指南1项、专家共识8项。带领团队入选中西医协同“旗舰”科室和国家重大疑难疾病中西医临床协作项目。创建帕金森病中西医结合一站式诊治中心,牵头成立上海帕金森病研究联盟(SHAPD)。入选上海市科委青年科技启明星、启明星跟踪计划、上海市白玉兰人才、上海浦江人才、上海市优秀学科带头人等多项人才培养计划。荣获“全国卫生计生系统先进工作者”称号。
参考文献:
[1]Husain M, Roiser JP. Neuroscience of apathy and anhedonia: a transdiagnostic approach. Nat Rev Neurosci, 2018, 19(8): 470-84.
[2]Costello H, Husain M, Roiser JP. Apathy and Motivation: Biological Basis and Drug Treatment. Annu Rev Pharmacol Toxicol, 2024, 64: 313-38.
[3]Stuber GD. Neurocircuits for motivation. Science, 2023, 382(6669): 394-8.
[4]Zhou W, Jin Y, Meng Q, Zhu X, Bai T, Tian Y, Mao Y, Wang L, Xie W, Zhong H, Zhang N, Luo MH, Tao W, Wang H, Li J, Li J, Qiu BS, Zhou JN, Li X, Xu H, Wang K, Zhang X, Liu Y, Richter-Levin G, Xu L, Zhang Z. A neural circuit for comorbid depressive symptoms in chronic pain. Nat Neurosci, 2019, 22(10): 1649-58.
[5]Markovic T, Pedersen CE, Massaly N, Vachez YM, Ruyle B, Murphy CA, Abiraman K, Shin JH, Garcia JJ, Yoon HJ, Alvarez VA, Bruchas MR, Creed MC, Moron JA. Pain induces adaptations in ventral tegmental area dopamine neurons to drive anhedonia-like behavior. Nat Neurosci, 2021, 24(11): 1601-13.
[6]Schwartz N, Temkin P, Jurado S, Lim BK, Heifets BD, Polepalli JS, Malenka RC. Chronic pain. Decreased motivation during chronic pain requires long-term depression in the nucleus accumbens. Science, 2014, 345(6196): 535-42.
[7]Petrovic P, Kalso E, Petersson KM, Ingvar M. Placebo and opioid analgesia-- imaging a shared neuronal network. Science, 2002, 295(5560): 1737-40.
[8]Bliss TV, Collingridge GL, Kaang BK, Zhuo M. Synaptic plasticity in the anterior cingulate cortex in acute and chronic pain. Nat Rev Neurosci, 2016, 17(8): 485-96.
[9]Fetcho RN, Parekh PK, Chou J, Kenwood M, Chalencon L, Estrin DJ, Johnson M, Liston C. A stress-sensitive frontostriatal circuit supporting effortful reward-seeking behavior. Neuron, 2024, 112(3): 473-87 e4.
[10]Li YD, Luo YJ, Su WK, Ge J, Crowther A, Chen ZK, Wang L, Lazarus M, Liu ZL, Qu WM, Huang ZL. Anterior cingulate cortex projections to the dorsal medial striatum underlie insomnia associated with chronic pain. Neuron, 2024, 112(8): 1328-41 e4.
[11]Xu W, Sun JY, Chu C, Yi X, Lin SJ, Wang SY, Liang JX, Wu YJ, Wang YL, Li XN, Liu YX, Lv Y, Wu J, Sun B, Xu TL, Liu Z, Song L, Li WG. Stepwise engagement of cingulate ensembles underlies motivational decline in chronic pain. Neuron, 2026, 115: 1–18..
[12]Hodos W. Progressive ratio as a measure of reward strength. Science, 1961, 134(3483): 943-4.
[13]Guenthner CJ, Miyamichi K, Yang HH, Heller HC, Luo L. Permanent genetic access to transiently active neurons via TRAP: targeted recombination in active populations. Neuron, 2013, 78(5): 773-84.
[14]Allen WE, Denardo LA, Chen MZ, Liu CD, Loh KM, Fenno LE, Ramakrishnan C, Deisseroth K, Luo L. Thirst-associated preoptic neurons encode an aversive motivational drive. Science, 2017, 357(6356): 1149-55.本文使用的来自枢密科技的病毒产品,列表如下:
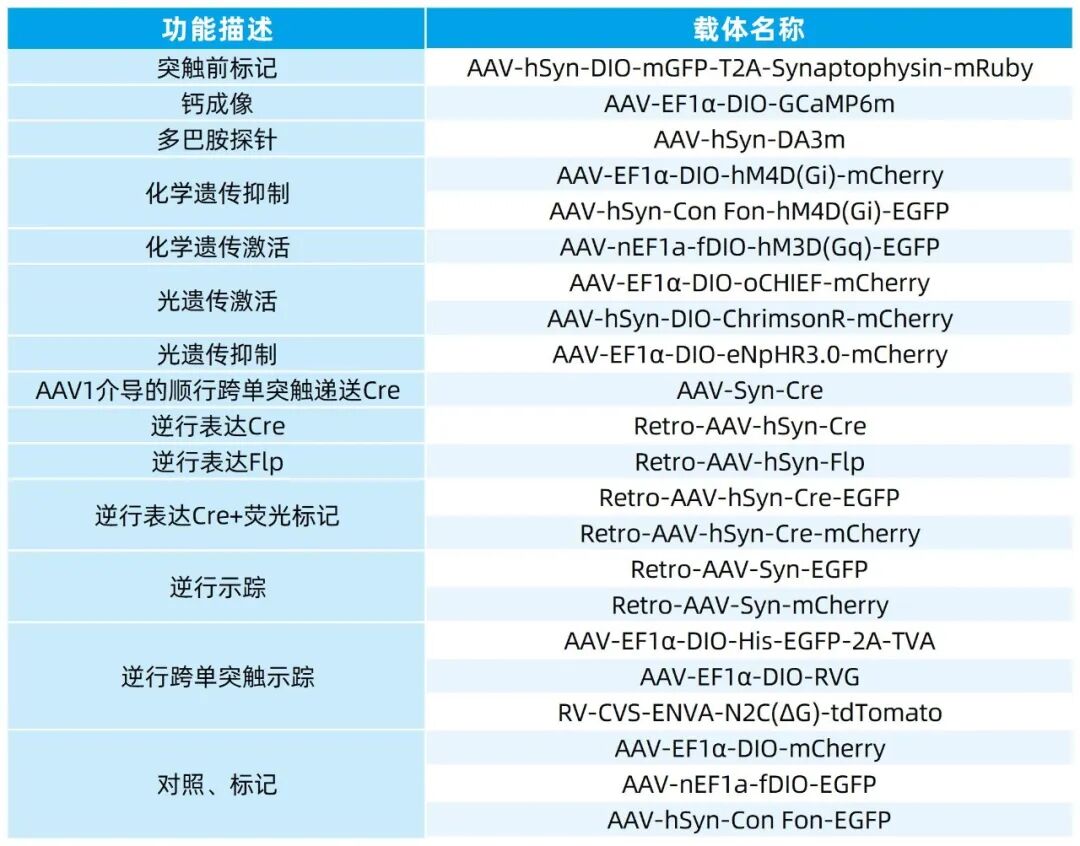
如有相关需求,或了解更多产品服务,欢迎咨询我们!点击进入店铺,查看更多产品及服务
