- 移动端

武汉枢密脑科学技术有限公司品牌商
8 年
手机商铺
- NaN
- 0.6000000000000001
- 1.6
- 0.6000000000000001
- 3.6
武汉枢密脑科学技术有限公司
入驻年限:8 年
- 联系人:
枢先生
- 所在地区:
湖北 武汉市 江夏区
- 业务范围:
抗体、试剂、细胞库 / 细胞培养、技术服务、耗材、实验室仪器 / 设备
- 经营模式:
生产厂商 经销商
推荐产品
公司新闻/正文
病理性α-突触核蛋白的传播在非转基因小鼠中引发帕金森样神经退行性变
72 人阅读发布时间:2026-10-20 09:42
突破模型局限
α-突触核蛋白传播介导帕金森样退变的直接证据
帕金森病(PD)的核心特征为神经元内大量α-突触核蛋白(α-Syn)聚集形成路易小体与路易神经突,同时伴随中脑多巴胺神经元大量丢失。但路易包涵体形成与神经退行性病变之间的因果关系尚未明确。本研究发现,对野生型非转基因小鼠进行单次纹状体内合成α-Syn纤维接种后,病理性α-Syn可在解剖学相连的脑区发生细胞间传递,并诱发类帕金森病的路易病理改变。路易病理的进行性累积会导致黑质致密部多巴胺神经元渐进性丢失(邻近腹侧被盖区不受影响),同时伴随多巴胺水平下降,最终引发运动功能障碍。该神经退行性级联反应模型的建立,明确了病理性α-Syn传播与PD核心特征之间的机制关联。
PD是一种多系统神经退行性疾病,主要包含两大病理进程:一是神经元内错误折叠的纤维状α-Syn聚集形成路易小体/路易神经突(LBs/LNs);二是中脑黑质致密部(SNpc)多巴胺(DA)神经元选择性退变,进而引发运动迟缓、震颤与姿势不稳等症状。尽管家族性PD中,常染色体显性遗传的α-Syn基因突变或扩增可直接将α-Syn功能异常与疾病发生相关联,但上述病理进程的病因仍未明确。此外,几乎所有散发性与家族性PD患者体内均存在α-Syn病理改变,且病理分布与临床症状具有相关性;但α-Syn错误折叠与多巴胺神经元丢失之间的精确关联仍存在争议——目前无论是转基因还是神经毒素诱导的PD动物模型,均无法完全复现人类帕金森病中的多巴胺神经元退变、运动障碍及类LB/LN的α-Syn病理特征。
越来越多的证据表明,神经退行性疾病相关的错误折叠纤维蛋白可自我增殖,并在中枢神经系统(CNS)的相连脑区间扩散,提示病理蛋白的细胞间传递参与了疾病进展。人类PD中LB/LN的累积模式具有高度刻板性,与疾病沿功能网络扩散的特征一致,说明病理性α-Syn的传播及其对内源性蛋白的诱导错误折叠,在PD的发生与进展中发挥核心作用。
此外有研究报道,PD患者移植的胚胎中脑神经元在多年后出现路易小体,进一步佐证了病理性α-Syn具有可传递性。与该假说一致,向过表达人源A53T突变α-Syn的转基因小鼠脑内接种重组蛋白制备的α-Syn预制纤维(PFFs),可促进内源性α-Syn转化为病理性LBs/LNs,加速神经症状出现与小鼠死亡。尽管上述数据表明α-Syn错误折叠与纤维化是神经元功能障碍/死亡的上游触发事件,但研究仅观察到极少量多巴胺神经元丢失;这可能与α-Syn转基因的表达模式改变、以及接种后小鼠快速死亡有关。
纹状体接种α-Syn预制纤维诱导野生型小鼠脑内路易样病理进行性扩散
合成的α-Syn PFFs可在野生型(wt)小鼠原代神经元培养物中,高效诱导可溶性内源性α-Syn聚集与纤维化;基于此,本研究探讨了LB/LN病理能否在野生型小鼠体内发生传递。研究首先将重组小鼠α-Syn组装的PFFs,通过立体定位注射接种至年轻野生型(C57BL6/C3H)小鼠的背侧纹状体;背侧纹状体可摄取PFFs,且与中脑多巴胺神经元等多个中枢神经核团存在纤维连接。单次单侧接种PFF后30天内,注射位点即可观察到高磷酸化α-Syn(pSyn,人类LBs/LNs的标志物沉积(图1A、B、G)。在人类突触核蛋白病中出现路易小体的纹状体直接连接脑区,包括大脑皮层Ⅳ-Ⅴ层与嗅球,也出现神经元内α-Syn聚集,主要为弥散的类路易神经突与类路易小体包涵体(图1C、D),证实野生型小鼠的内源性α-Syn发生了病理性转化。注射后30天,除纹状体双侧投射的杏仁核外,pSyn阳性的类路易小体聚集仅出现在注射侧脑区,提示细胞间传递遵循神经元间的连接通路。
注射后90天与180天,受累脑区的LB/LN病理中pSyn免疫反应性显著增强(图1E、F、G)。对侧新皮层等更多脑区也出现LBs/LNs,提示病理向中枢神经系统进行性扩散(图1F-I)。对30、90、180天小鼠的pSyn病理分布图谱分析显示(图1G),30-180天内LBs/LNs呈时间依赖性扩散,原本30天未受累的腹侧纹状体、丘脑、枕叶皮层,以及连合纤维与脑干纤维,均相继出现病理改变。尽管海马、隔区、小脑等多个脑区未出现包涵体(图1G),但向海马立体定位接种等量PFFs后,该脑区出现大量α-Syn病理聚集,说明海马神经元同样对传递而来的病理性α-Syn易感。综上,LBs/LNs的扩散依赖神经连接,这也解释了α-Syn PFF诱导模型中LBs/LNs分布不均的现象。相比之下,注射单体α-Syn或PBS的小鼠,在所有观察时间点均未出现α-Syn病理改变(图1J)。
纹状体接种PFF后,向背侧纹状体中型多棘神经元投射的酪氨酸羟化酶(TH)阳性SNpc多巴胺神经元中,出现大量α-Syn病理改变(图1K、L);而该类神经元的选择性退变正是PD运动障碍的主要诱因。此外,PFF接种小鼠的α-Syn病理与路易小体关键标志物(泛素、热休克蛋白90、淀粉样蛋白结合染料硫黄素S)存在共定位,说明该病理与人类PD中真实的LBs/LNs具有共同特征。
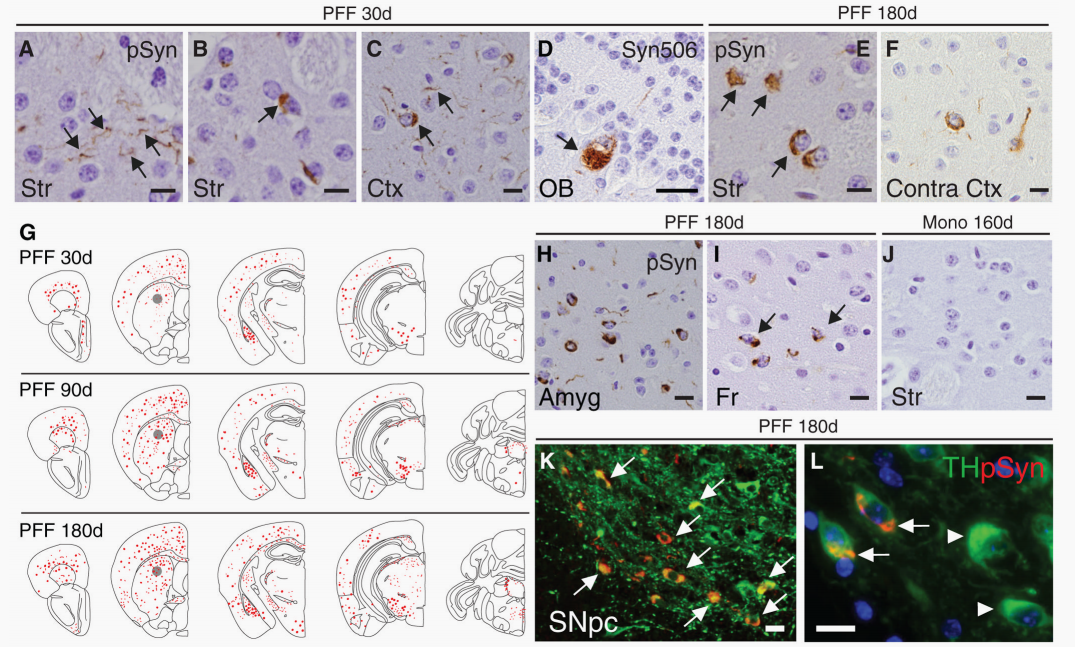
图1 纹状体内接种合成小鼠α-Syn预制纤维,诱导野生型小鼠内源性突触核蛋白聚集
PFF注射后,SNpc的α-Syn病理呈进行性发展:注射后30天表现为淡染的胞质聚集,90天与180天进展为核周致密的类路易小体包涵体,在腹内侧SNpc神经元中尤为明显(图2A-C)。由于黑质纹状体通路为单侧投射,所有观察时间点内,SNpc的LB/LN病理均局限于注射侧大脑半球(图1G、图2A-D)。除腹侧被盖区(VTA)神经元无病理改变外,表达多巴胺的嗅球小球中间神经元、下丘脑弓状核细胞也未出现α-Syn病理。同样,NA能神经元(蓝斑)与5-羟色胺能神经元(中缝核)在注射后180天也未受累,说明不同单胺能神经元对病理性α-Syn扩散的易感性存在差异。
SNpc出现α-突触核蛋白病理的同时,TH免疫反应性与神经元数量呈单侧渐进性下降(图2F-I),提示神经元内α-Syn包涵体可导致多巴胺神经元丢失。注射后30天,27.7%的SNpc多巴胺神经元与pSyn病理共定位(图2K);此时两侧大脑半球的SNpc与VTA多巴胺神经元数量无显著差异(图2L、M)。仅SNpc多巴胺神经元形成LBs/LNs,VTA多巴胺神经元未受累,证实错误折叠的α-Syn通过神经网路投射传递,且神经连接是决定神经元易感性的关键因素。随时间推移,含包涵体的SNpc多巴胺神经元比例未持续上升,反而逐渐下降。注射后90天与180天,SNpc多巴胺神经元分别减少15%与35%,说明LBs/LNs形成早于SNpc多巴胺神经元丢失。此外,对侧SNpc与双侧VTA的多巴胺神经元(包涵体占比<0.2%,图2K),与PBS注射组、单体注射组、同龄未注射组,以及PFF接种的Snca基因敲除小鼠的对应神经元无明显差异;上述对照组均未出现α-Syn沉积(图2D、K-M)。综上,病理性α-Syn的累积处于SNpc多巴胺神经元丢失的上游,且二者直接相关。
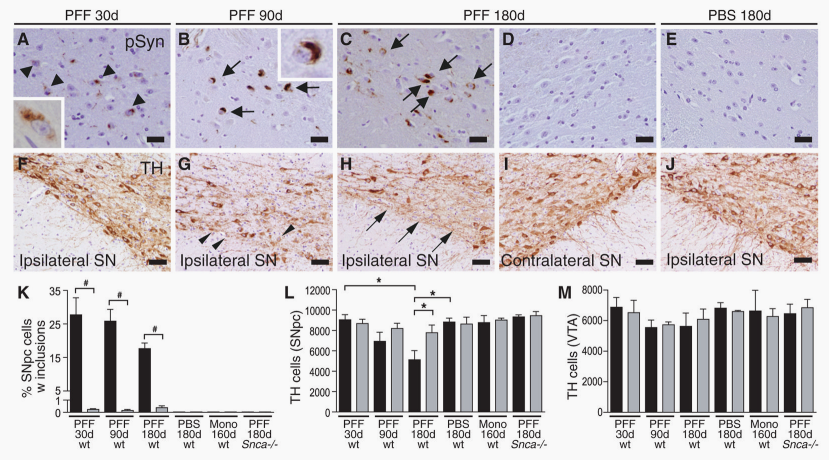
图2 种子化α-Syn病理诱导多巴胺系统进行性退变
伴随SNpc神经元进行性丢失,PFF接种后,注射侧纹状体内多巴胺及其代谢产物浓度进行性降低;对侧纹状体多巴胺水平无变化,双侧(NA)水平均未改变(图3A、B)。免疫印迹分析证实,注射侧纹状体的TH与多巴胺转运体(DAT)表达下调(图3C),与黑质纹状体多巴胺神经支配丢失的结果一致。尽管多巴胺神经末梢丢失,但D1、D2多巴胺受体水平保持稳定(图3C),说明纹状体中型多棘投射神经元未受破坏。
鉴于PFF接种的野生型小鼠出现类帕金森病的路易病理、SNpc神经元丢失与纹状体多巴胺水平下降,推测其会出现帕金森病样的运动功能改变。尽管注射后180天内未观察到明显的大体运动或行为异常,但转棒实验显示,PFF注射小鼠的运动表现呈进行性显著下降,提示其运动协调与平衡功能受损(图3D左)。此外,α-Syn病理小鼠的悬线实验表现不佳(该实验用于补充评估肌力与协调能力);注射后30天与180天,小鼠成绩较基线分别下降53%与81%(图3D中)。但旷场实验中小鼠活动量无变化,说明其整体运动活跃度未受显著影响(图3D右)。
如前所述,纹状体内接种PFF的小鼠未出现海马病理改变(图1G),Y迷宫实验也未检测到记忆功能变化(图3E)。这一结果支持本研究的推论:神经元功能下降与受累神经元内α-Syn病理的加重相关。此外,与中脑边缘通路相对保留的特征一致,PFF处理组与对照组小鼠的悬尾实验(抑郁样行为检测)结果无显著差异(图3E右)。纹状体接种PFF的Snca杂合小鼠也呈现α-Syn病理与神经元损伤的相关性:注射后180天,其SNpc α-Syn病理与运动障碍程度均轻于野生型小鼠(图3D、E)。最后,向野生型CD1小鼠与C57BL6/SJL小鼠纹状体内接种PFF,同样可诱导α-Syn病理传递,说明LBs/LNs的细胞间扩散不依赖小鼠遗传背景。
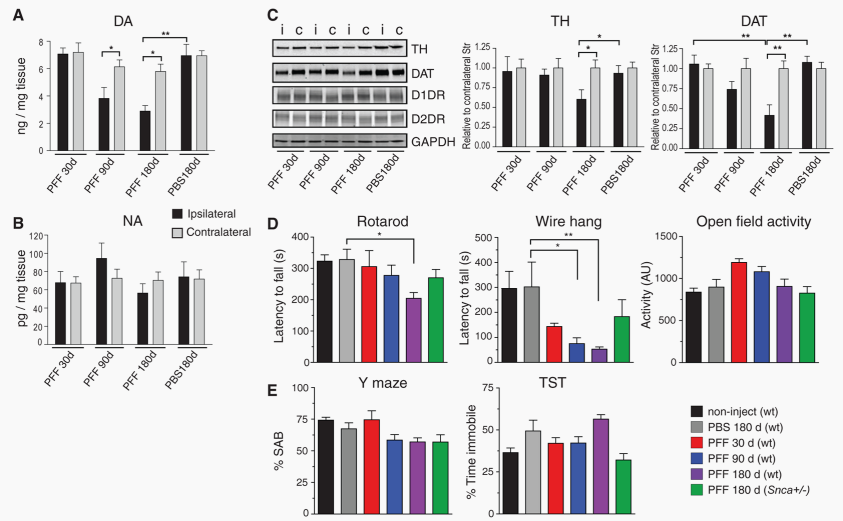
图3 α-Syn PFF注射的野生型小鼠出现纹状体多巴胺水平下降与运动功能障碍
本研究证实:向野生型小鼠纹状体内单次注射合成的错误折叠α-Syn种子,可启动神经退行性级联反应,诱发细胞内LB/LN病理累积、SNpc多巴胺神经元选择性丢失,以及运动协调功能障碍。因此,α-Syn病理足以诱导散发性帕金森病的核心行为学与病理学特征。
如有相关需求,或了解更多产品服务,欢迎咨询我们!点击进入店铺,查看更多产品及服务
