- 移动端

武汉枢密脑科学技术有限公司品牌商
8 年
手机商铺
- NaN
- 0.6000000000000001
- 1.6
- 0.6000000000000001
- 3.6
武汉枢密脑科学技术有限公司
入驻年限:8 年
- 联系人:
枢先生
- 所在地区:
湖北 武汉市 江夏区
- 业务范围:
抗体、试剂、细胞库 / 细胞培养、技术服务、耗材、实验室仪器 / 设备
- 经营模式:
生产厂商 经销商
推荐产品
公司新闻/正文
IF=14.1【客户文章】Adv Sci︱大脑如何在噪音中瞬间觉察危险?广州国家实验室尚从平团队揭示调控听觉本能防御行为的神经环路机制
9 人阅读发布时间:2026-11-12 10:27
撰文︱曹 杰
审阅︱尚从平
群居动物会通过“哨兵”来快速通报危险,处于中间生态位的啮齿类动物也会利用该预警声在极短时间内作出本能防御反应(迅速逃跑、瞳孔扩大、心跳加快、呼吸急促),这对动物的生存至关重要[1,2]。然而,大脑如何从复杂的声音中识别具有威胁意义的声学信号,并将其快速转化为逃跑、自主神经反应以及更加持久的负性情绪状态?既往研究发现,听觉皮层、中脑下丘以及导水管周围灰质等多个脑区均参与声音诱发的防御行为[3,4]。但究竟是哪一类神经元负责“识别”威胁声音,以及这些神经元通过怎样的皮层下环路诱发防御状态和焦虑样行为尚不明确。
2026年9月27日,广州国家实验室尚从平团队在Advanced Science期刊上发表题为“A molecularly defined midbrain circuit mechanism for sound-driven defensive behavior and anxiety”的研究论文,的研究论文,该研究在雄性小鼠中鉴定出下丘外壳区(inferior colliculus shell region,ICx)中表达小脑肽2(Cbln2)、响应听觉本能防御反应的关键神经元,并进一步揭示耳蜗核谷氨酸能神经元(CNGlu)→下丘外壳区Cbln2⁺神经元(ICxCbln2)→背侧导水管周围灰质谷氨酸能神经元(dPAGGlu)皮层下通路参与处理声音诱发的本能防御和焦虑样行为的神经机制。
研究人员首先筛选能够稳定诱导小鼠防御行为的声学刺激频段。通过向小鼠播放不同频率范围的递增调频声音,并比较刺激前、刺激期间以及刺激后的运动状态。结果发现,17-20 kHz调频声音能够显著提高小鼠运动速度,诱导快速逃跑行为,而且这种逃跑反应随着声音强度增加而增强。但“逃跑”只是防御状态的一部分。同步记录显示,17-20 kHz声音还能诱导明显的瞳孔扩大、心率升高以及呼吸频率增加。在条件性位置厌恶实验中,小鼠会厌恶与17-20 kHz声音匹配的小室,并形成相应的恐惧记忆。
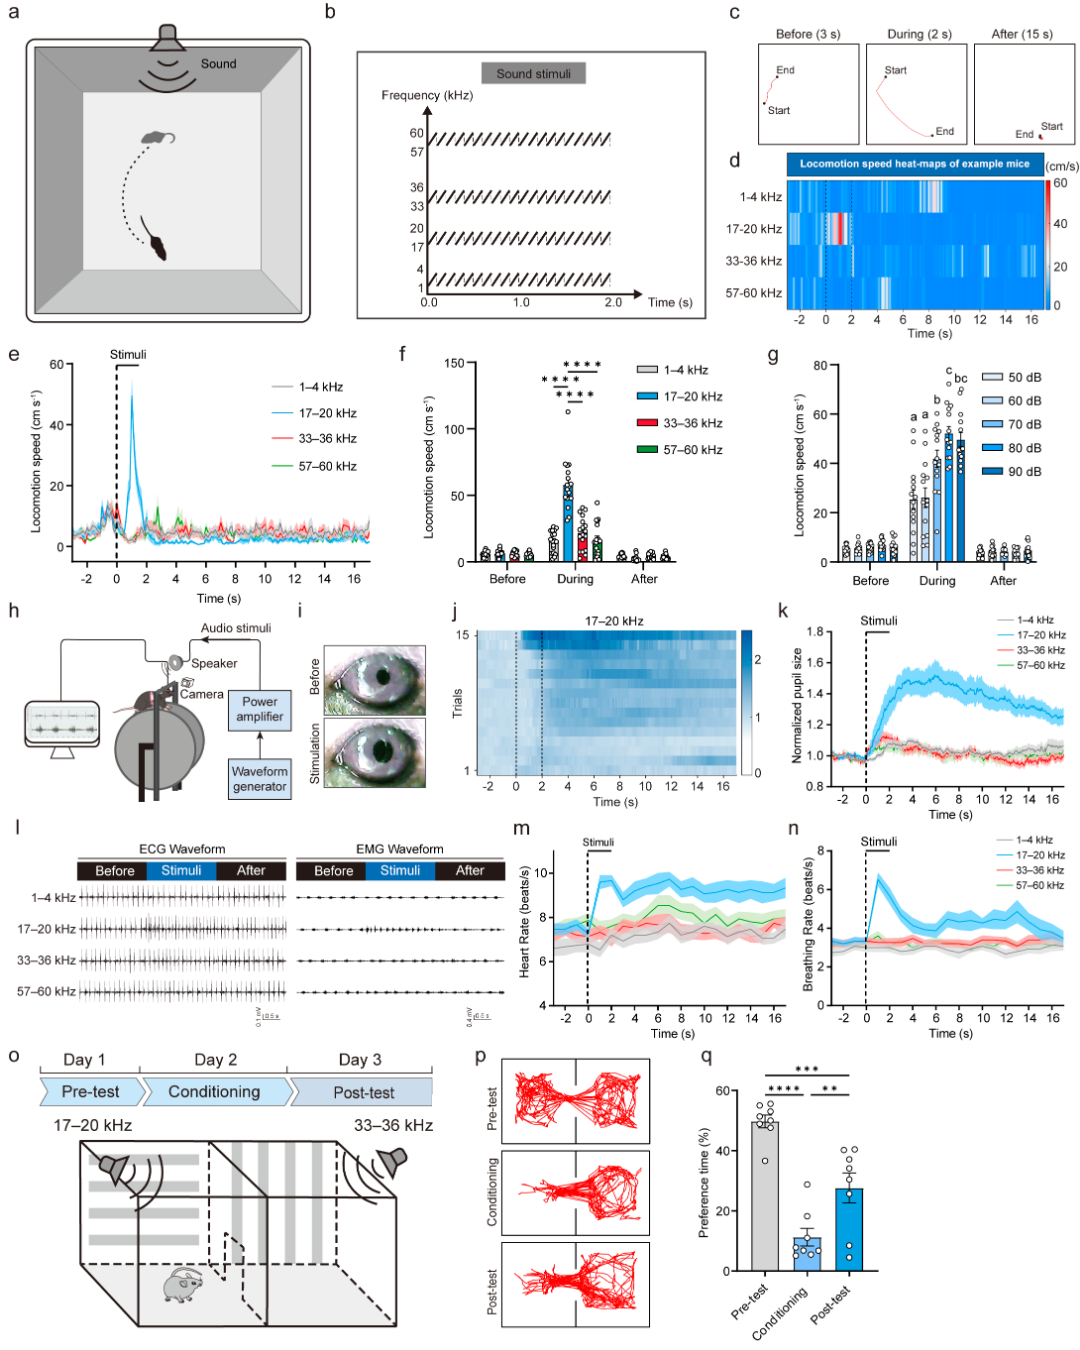
图1. 17-20 kHz声音诱导逃跑、自主神经激活和条件性位置厌恶
接下来,研究人员采用FosTRAP2(活动依赖的神经元标记)技术,分别标记17-20 kHz和33-36 kHz声音激活的ICx神经元。第21天,利用光遗传学重新激活这些声音响应神经元。结果显示,重新激活17-20 kHz声音TRAP到的ICx神经元能够迅速诱发逃跑、条件性位置厌恶以及恐惧记忆;而激活33-36 kHz声音TRAP到的神经元则不能产生防御行为。免疫染色结果显示,17-20 kHz声音激活的ICx神经元主要属于谷氨酸能兴奋性神经元。研究人员进一步比较不同听觉区域后发现,直接激活ICx谷氨酸能神经元能够强烈诱发防御行为,而光遗传学激活耳蜗核(CN)、上橄榄核(SO)、内侧膝状体(MGB)或听觉皮层(ACx)中的谷氨酸能神经元并不能产生相当的防御反应。反过来,病毒介导的ICx谷氨酸能神经元消融可明显降低17-20 kHz声音诱发的逃跑及部分自主神经反应。
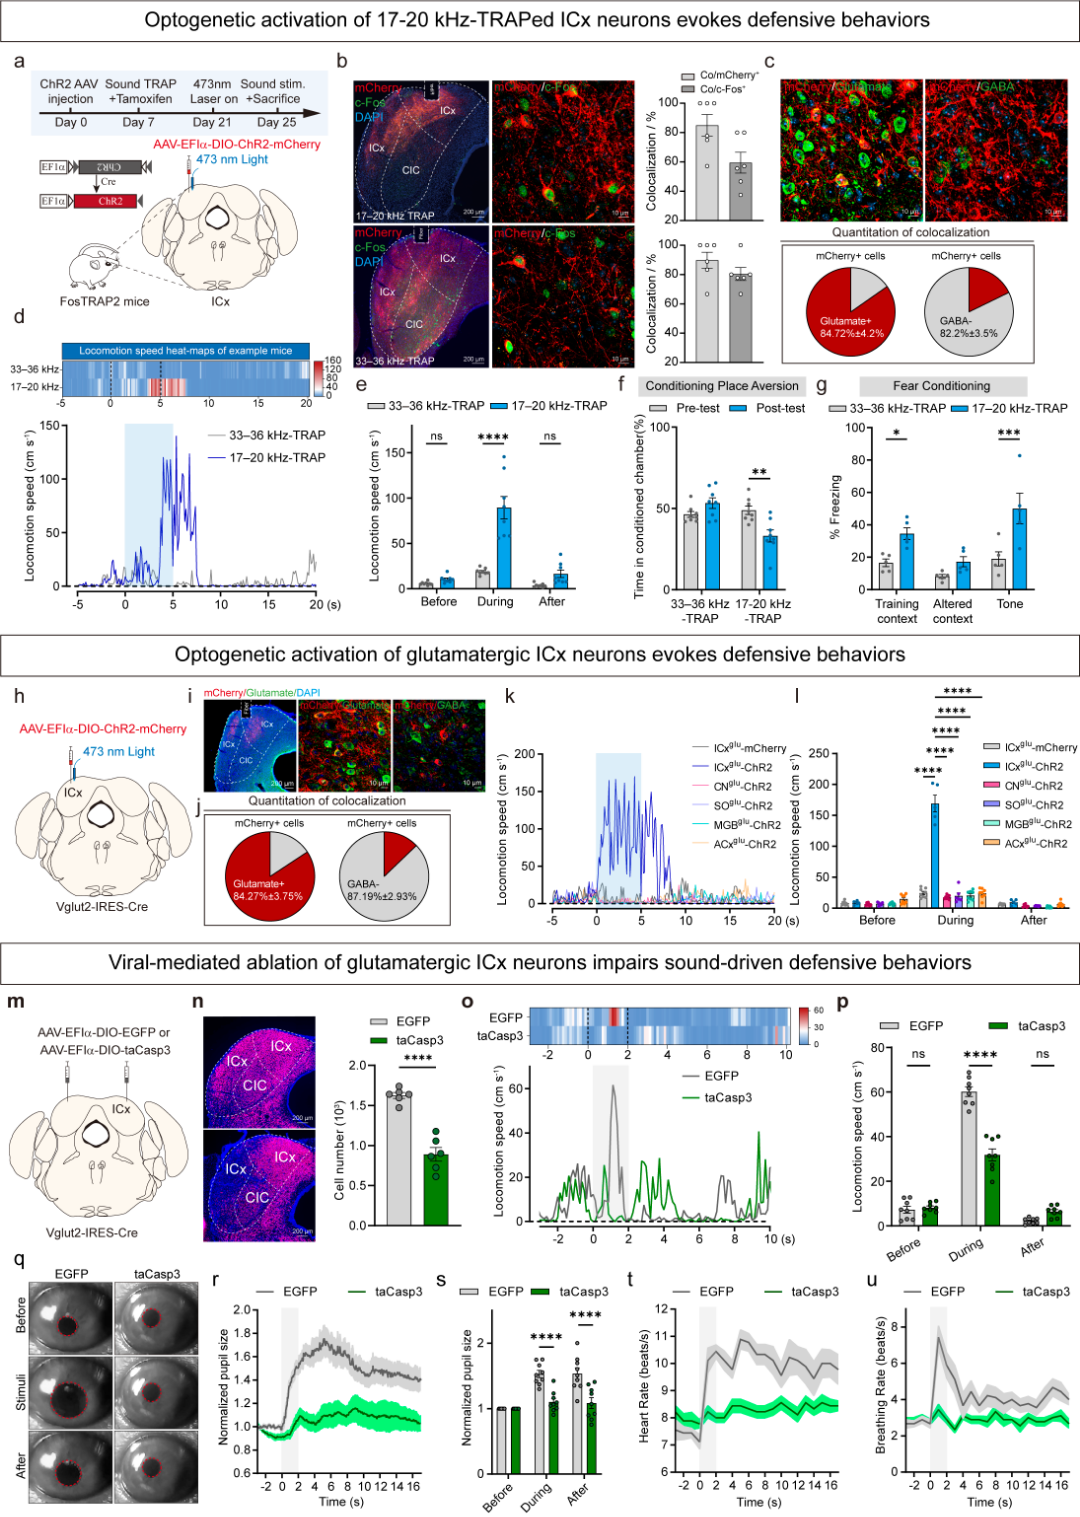
图2. 17-20 kHz TRAPed ICx神经元及ICx谷氨酸能神经元的功能验证
然而ICx谷氨酸能神经元存在异质性,研究人员进一步利用单核RNA测序鉴定出下丘神经元不同分子亚型。其中,Cbln2和胆囊收缩素(Cck)分别标记两个主要的兴奋性神经元亚群,二者只有很少的重叠。随后,研究人员探索了Cbln2⁺和Cck⁺ ICx神经元是否因果关联声音诱发的本能防御。分别光激活Cbln2⁺和Cck⁺ ICx神经元,以比较它们在声音防御中的功能。
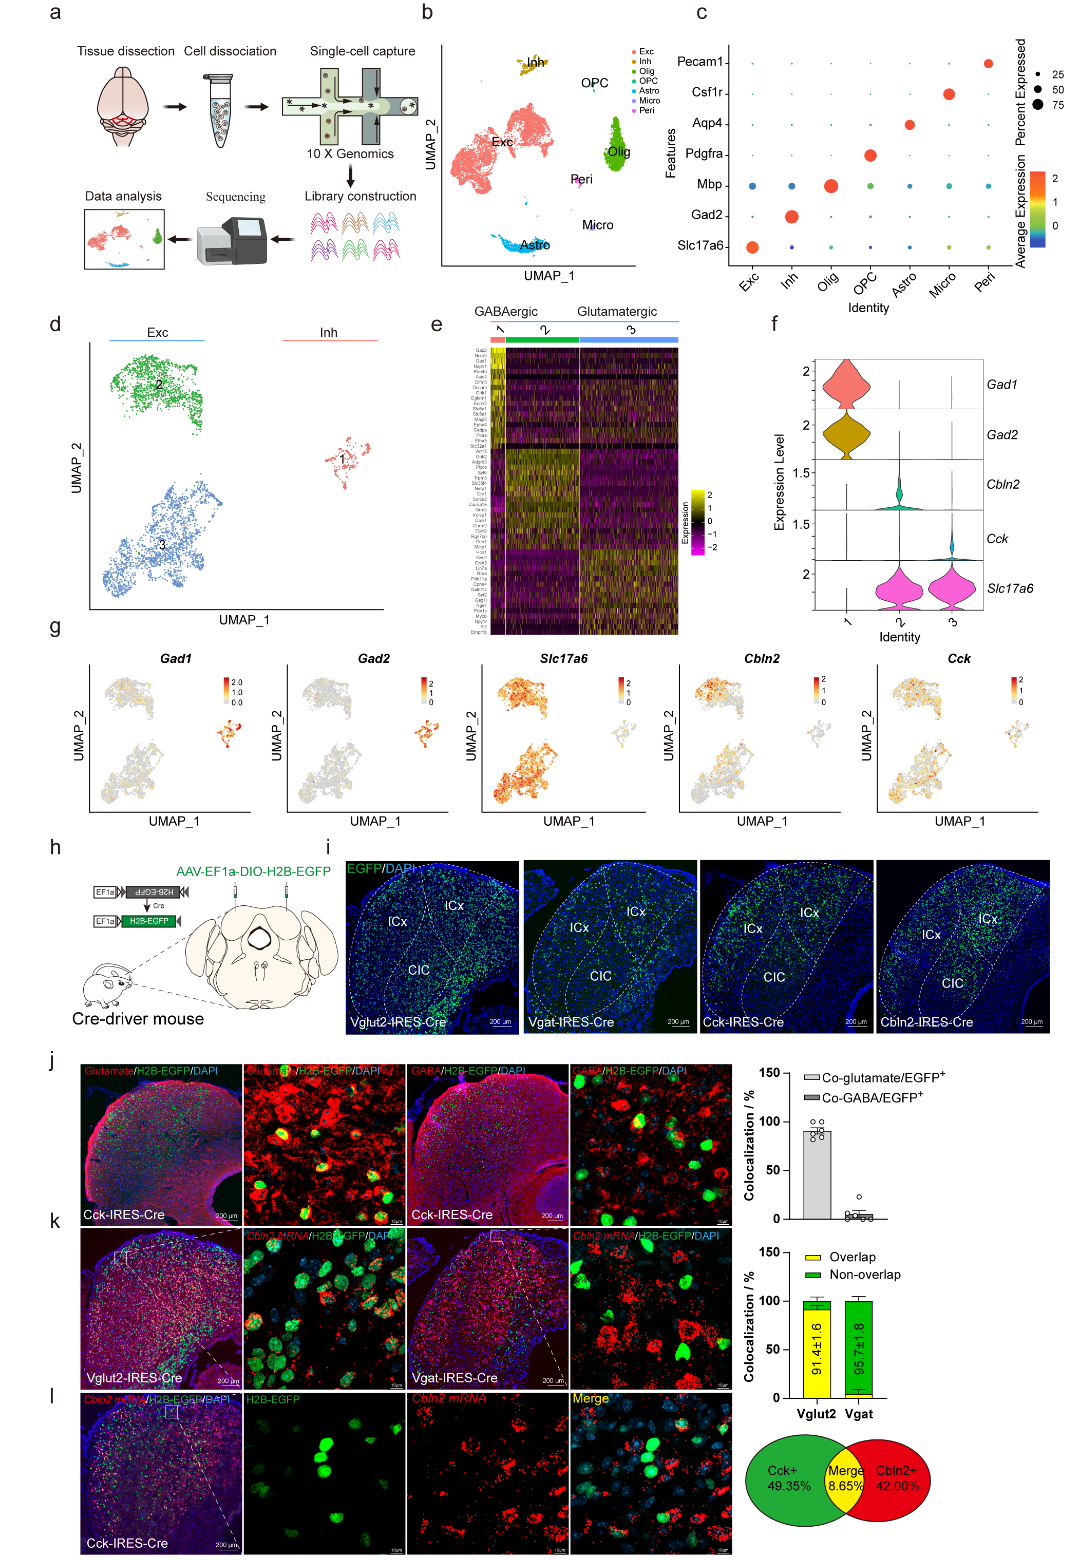
图3. 单核转录组鉴定并组织学验证下丘(IC)神经元亚型
结果显示,激活ICxCbln2能够立即诱导强烈逃跑,并伴随瞳孔扩大、心率增加、呼吸加快、位置厌恶和恐惧记忆形成;而激活ICxCck神经元并不能诱发小鼠防御状态。此外还测试ICxCbln2在17-20 kHz声音诱发本能防御行为中的作用,研究人员通过病毒介导的消融ICxCbln2后,发现17-20 kHz声音诱发的防御反应明显减弱。
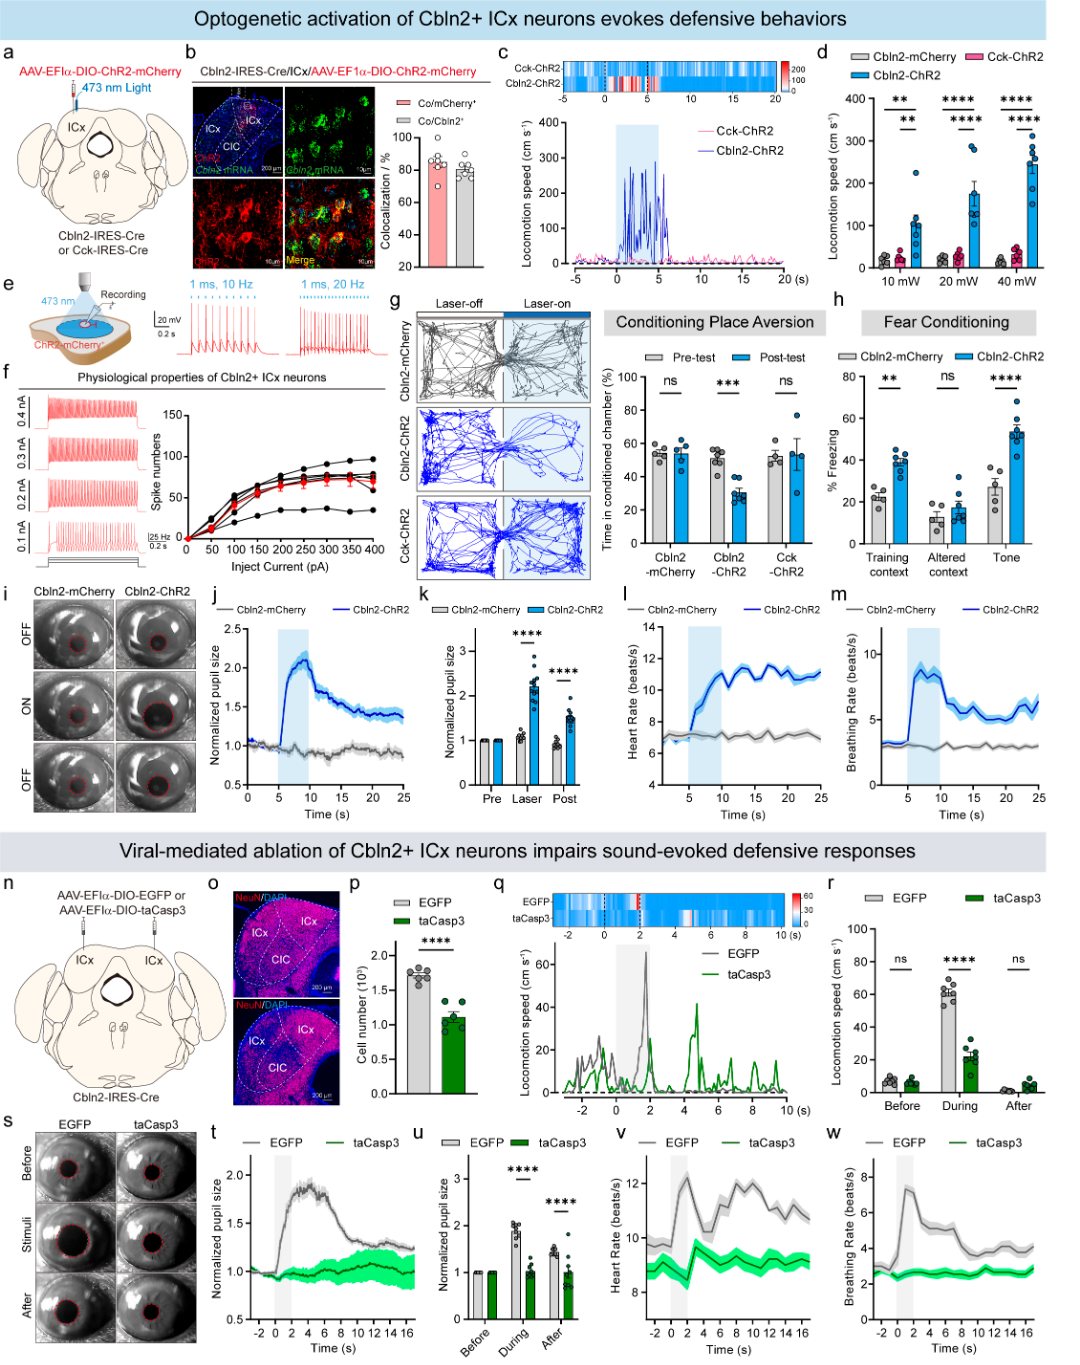
图4. ICxCbln2介导威胁性声音诱发的防御反应
光纤钙信号记录和在体双光子钙成像显示,ICxCbln2群体水平和单细胞水平的Ca²⁺信号能被17-20 kHz声音显著激活,而对其他测试频率响应很弱。为了获得更高的时间分辨率,研究人员进一步在清醒小鼠中进行光电极记录。在ICxCbln2中表达了光敏感通道蛋白ChR2,使用光电极记录光脉冲诱发的动作电位(APs),发现17-20 kHz声音刺激能明显诱发ICxCbln2放电,而且其放电频率能够随着声音强度增加而增强。
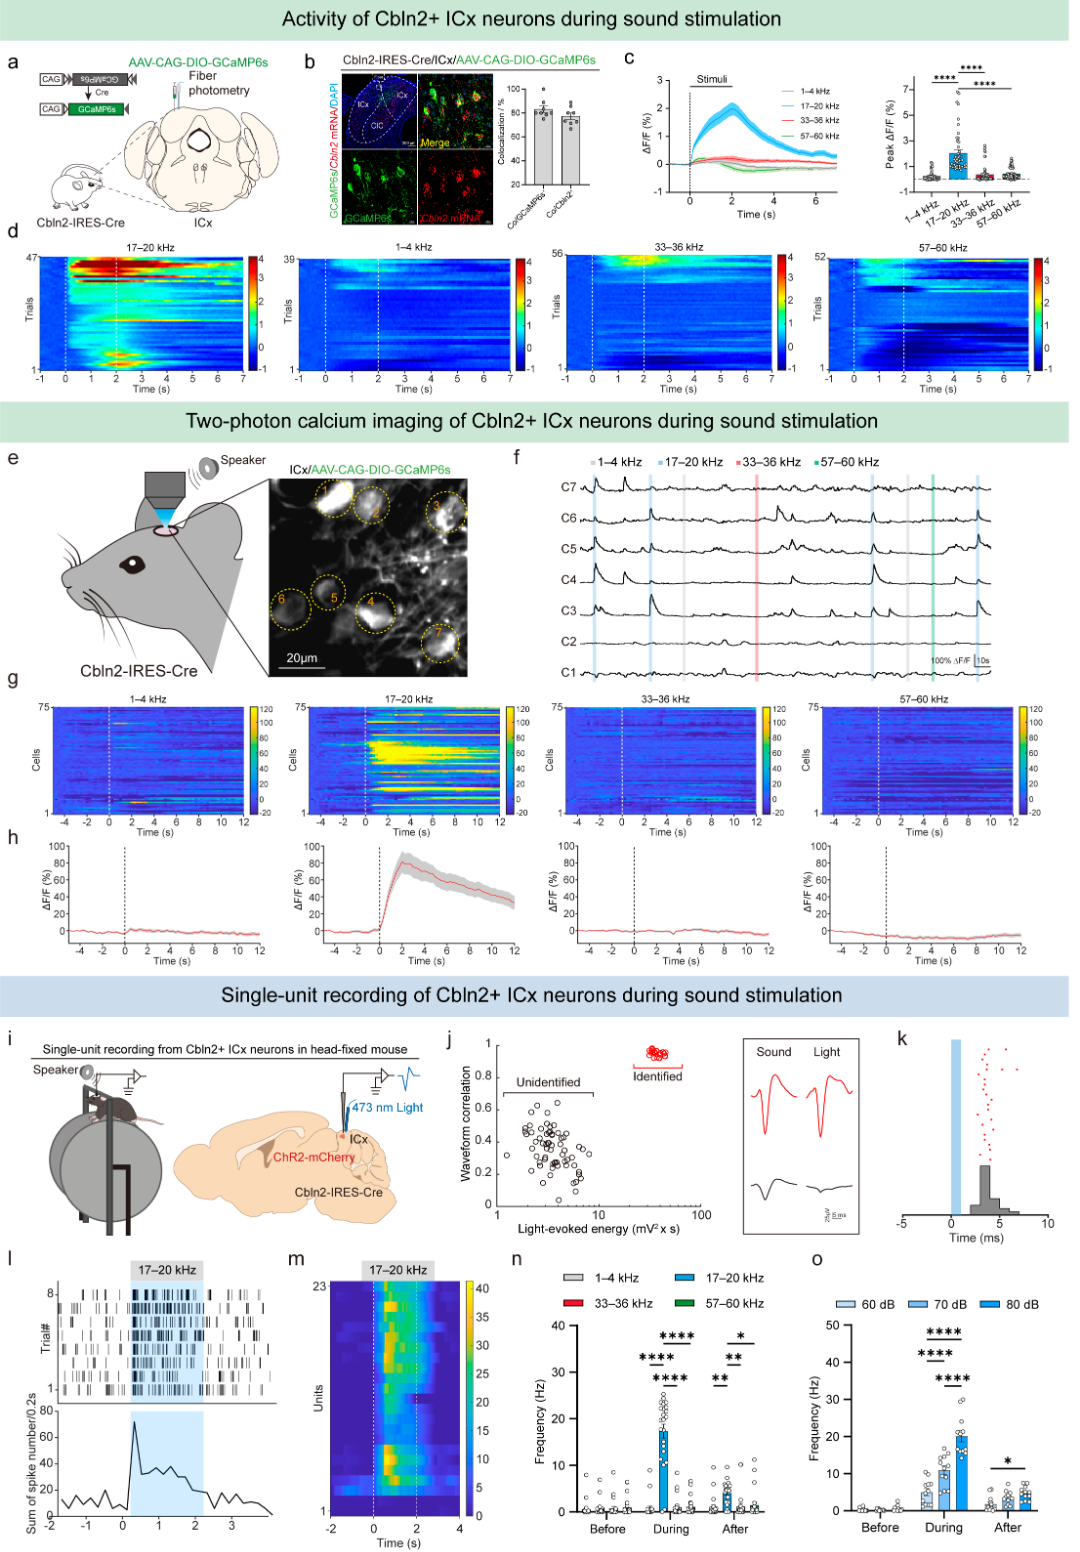
图5. 声音刺激期间ICxCbln2神经元的活动
顺行示踪显示,ICxCbln2投射到多个下游脑区,包括dPAG、CnF、ATm、SPF等。研究团队分别刺激这些区域中的ICxCbln2轴突末梢。结果发现,只有刺激ICx-dPAG投射能够稳定诱发强烈的逃跑行为,而刺激ICx-CnF、ICx-ATm或ICx-SPF投射均没有产生逃跑反应。脑片电生理进一步表明,ICxCbln2能够与dPAG谷氨酸能神经元形成兴奋性突触连接。激活这一通路还能诱发瞳孔扩大、心率和呼吸增加;相反,选择性消融投射至dPAG的ICxCbln2后,17-20 kHz声音诱发的逃跑及自主神经反应明显减弱。
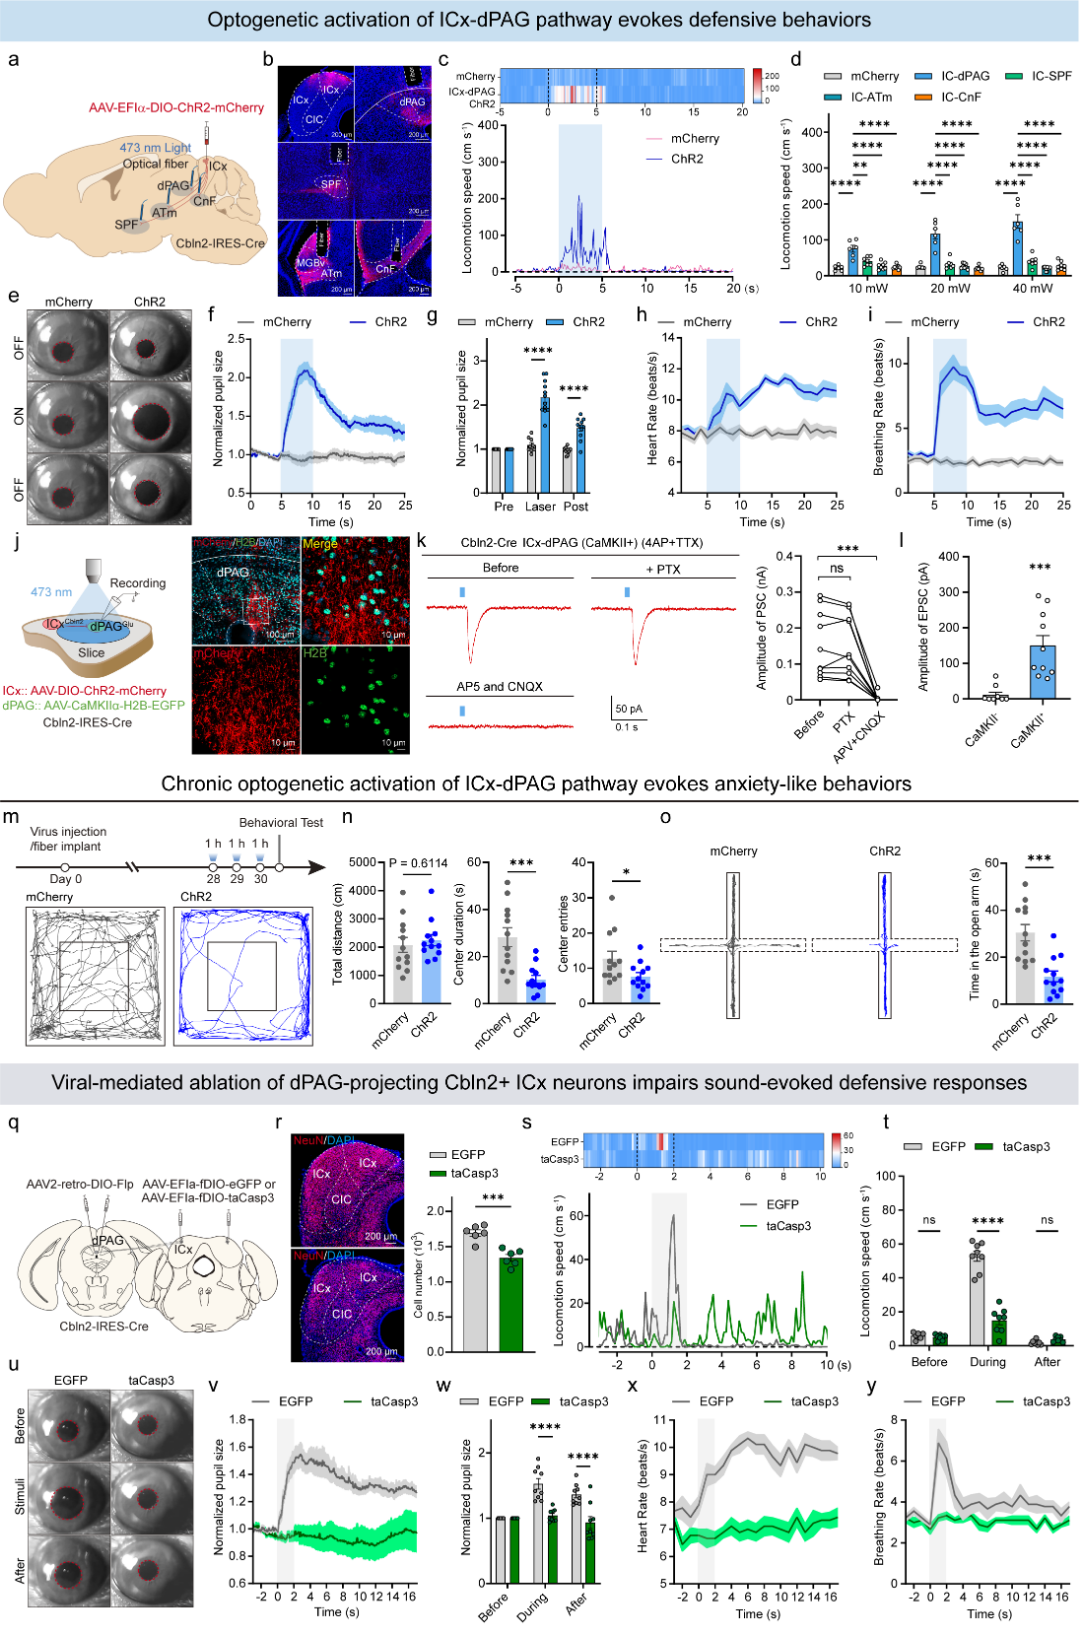
图6. ICxCbln2-dPAG通路参与声音诱发的防御行为,重复激活诱导焦虑样行为
原本负责瞬时逃跑的防御环路被反复激活,会发生什么?研究人员连续3天、每天1小时反复激活ICxCbln2-dPAG通路。结果发现,小鼠在开放场实验中的中心区探索明显减少,在高架十字迷宫中的开放臂探索也明显降低,表现出焦虑样行为。更重要的是,这种表型不仅存在于光遗传刺激条件下。当小鼠连续3天、每天1小时反复接受17-20 kHz声音后,同样表现出焦虑样行为,而33-36 kHz声音并未诱发这一表型。随后,研究人员利用交叉病毒策略,在反复声音暴露期间通路特异性抑制投射至dPAG的ICxCbln2神经元。结果显示,抑制ICxCbln2-dPAG通路能够显著降低反复17-20 kHz声音诱导的焦虑样行为。
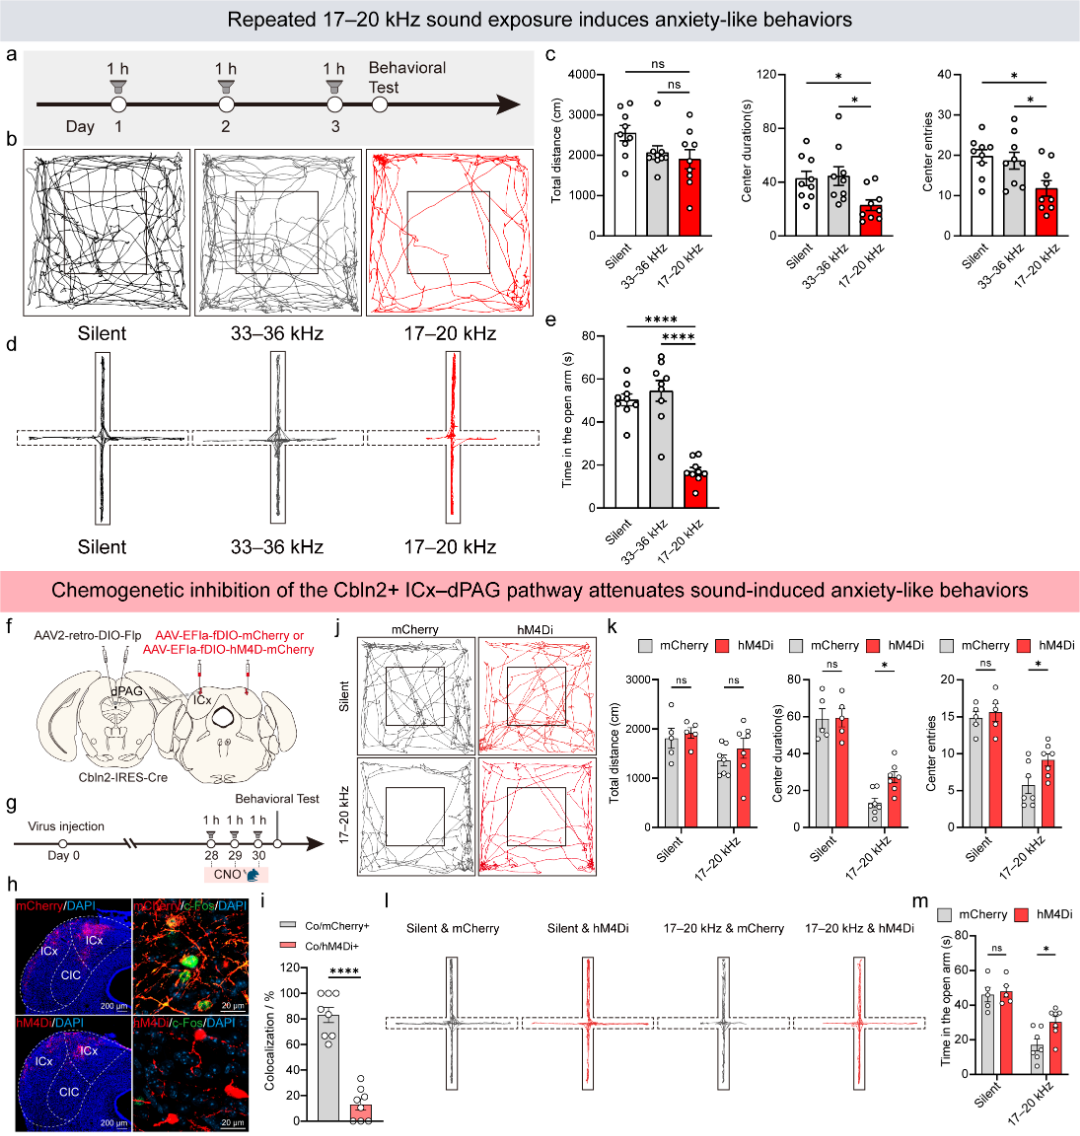
图7. 反复17-20 kHz声音暴露诱导焦虑样行为,抑制ICxCbln2-dPAG通路可减弱该表型
单突触逆行示踪发现,投射至dPAG的ICxCbln2神经元能够接收来自多个脑区的输入,其中包括CN等脑干听觉核团。利用taCasp3选择性消融投射至ICx的CNGlu后,17-20 kHz声音诱发的逃跑明显减弱,表明CNGlu-ICx是这一皮层下听觉防御通路的重要上游输入。
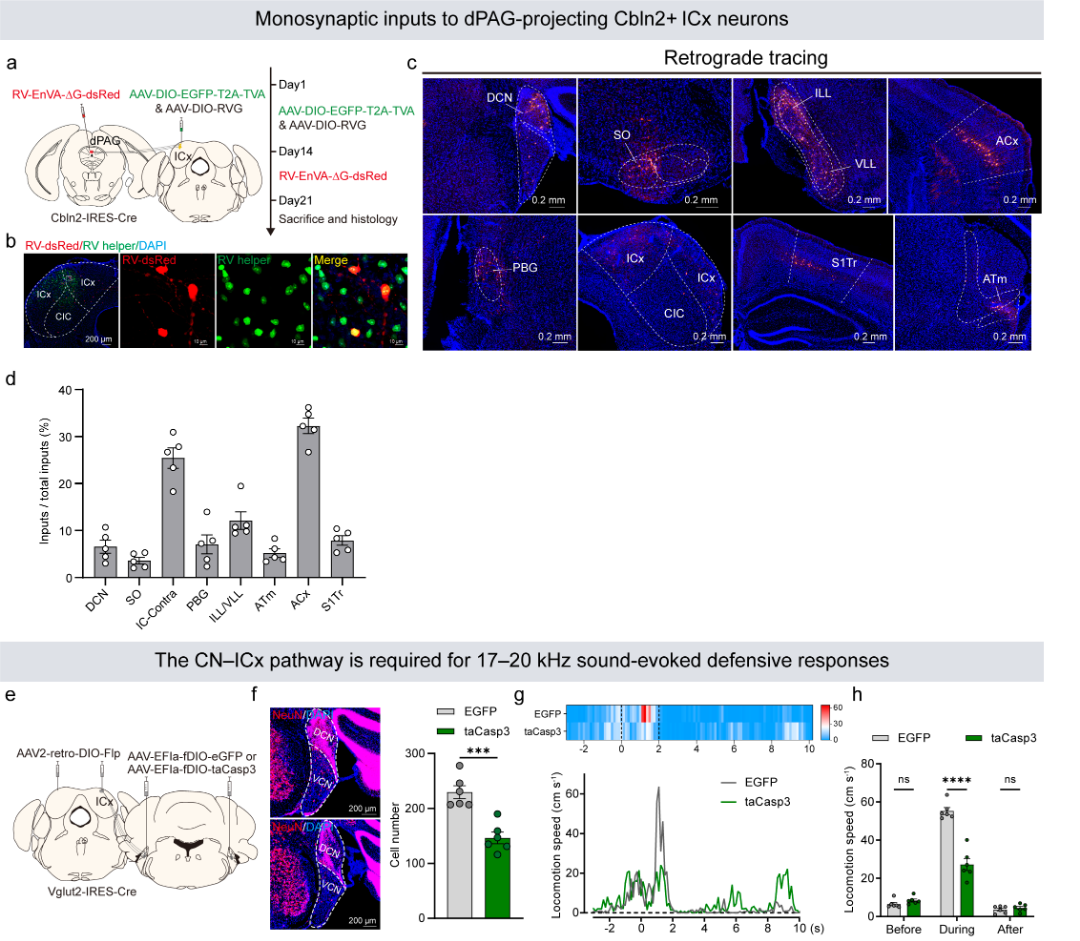
图8. ICxCbln2-dPAG神经元上游输入核团及CN-ICx通路功能验证
研究还进一步发现,Cbln2本身并不只是一个用于标记细胞身份的分子。敲低ICx中的Cbln2并没有造成明显的神经元丢失,却同时削弱了CNGlu-ICxCbln2神经元,以及ICxCbln2-dPAGGlu神经元两个方向的兴奋性突触传递。因此,Cbln2可能通过维持这条环路输入端和输出端的突触效能,为威胁声音信息在CN-ICx-dPAG通路中的有效传递提供分子基础。
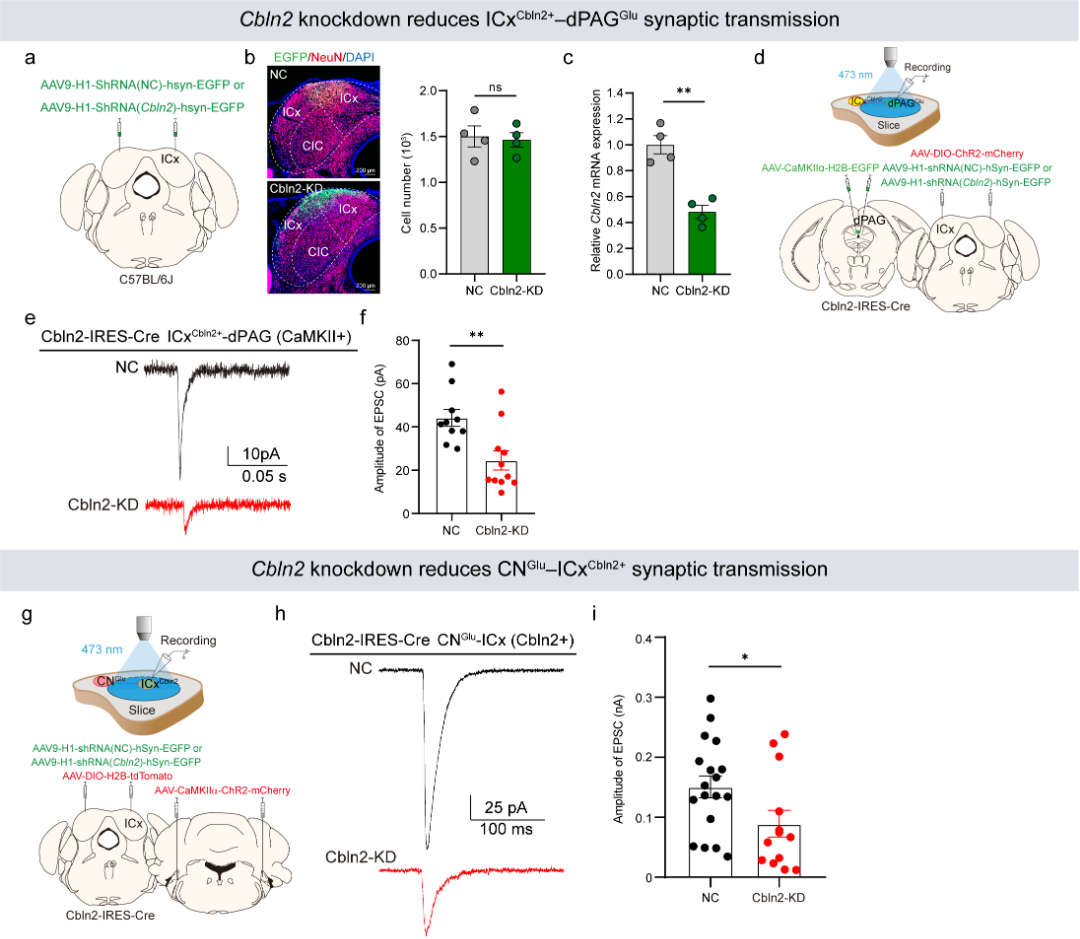
图9. Cbln2敲低抑制CNGlu-ICxCbln2-dPAGGlu通路的兴奋性突触传递
总结
综上,该项研究将听觉威胁感知、本能防御输出、细胞亚型特异性环路和焦虑样行为形成联系起来,描绘出一条较为完整的声音诱发的本能防御调控环路。其中,ICxCbln2特异性的响应17-20 kHz威胁相关声音,并将这一听觉信息传递至中脑防御中枢dPAG,从而驱动逃跑和防御性自主神经激活,而反复激活该环路可诱发焦虑样状态。此外,Cbln2基因还参与维持CN-ICx输入和ICx-dPAG输出的兴奋性突触效能。这为理解听觉威胁信息如何从感知转化为行为与情绪状态提供了新的细胞和突触基础。然而,该研究仍存在一些局限性。首先,本研究的所有实验均仅在雄性小鼠中进行。尽管雌雄小鼠在部分急性本能防御反应中可表现出相似的逃跑行为,但在威胁后的应对策略、焦虑样行为及持续性负性情绪状态方面可能存在性别差异。因此,该机制是否存在性别依赖的调控模式,需要进一步研究。其次,Cbln2如何在分子层面组织和维持这两级突触,以及其与神经连接蛋白(neurexin)、谷氨酸受体δ(GluD)等突触分子之间的关系,仍有待解析。以上研究发现与早期视觉恐惧神经机制研究形成体系,两种不同感觉通道的恐惧范式,为研究急慢性情绪应激与呼吸调控的交互提供了可量化的动物模型,也为探索恐慌相关情绪障碍与呼吸慢病共病的神经机制提供了实验基础。
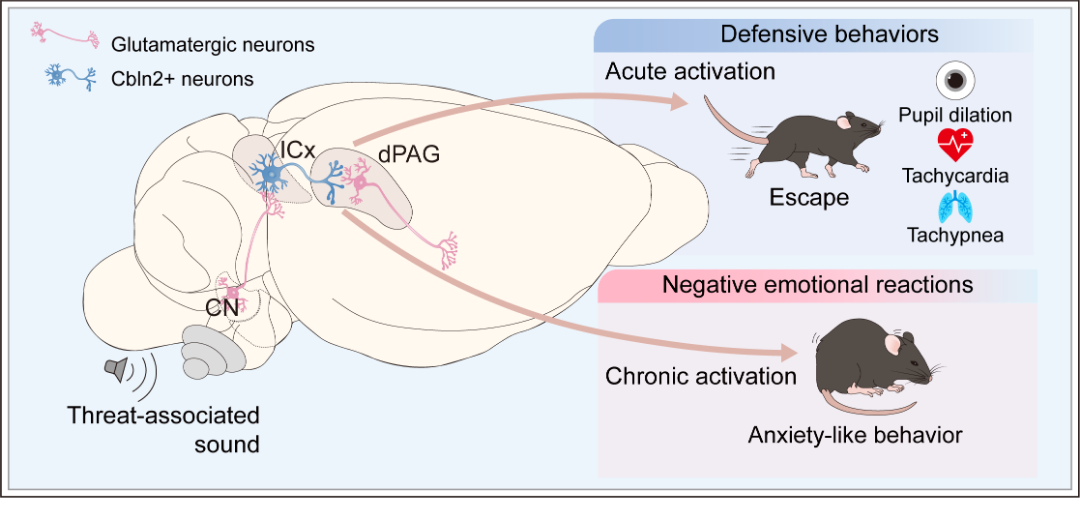
图10. CNGlu-ICxCbln2-dPAGGlu通路调控威胁性声音诱导防御状态和焦虑样行为神经环路机制示意图
广州医科大学/广州国家实验室尚从平研究员为本文通讯作者,广州国家实验室博士后曹杰、博士研究生赖星星、博士后霍立芳为论文的共同第一作者。南方医科大学孙向东教授为本研究提供了宝贵意见。
参考文献:
1.Kim, E. J., Kim, E. S., Covey, E. & Kim, J. J. Social transmission of fear in rats: the role of 22-kHz ultrasonic distress vocalization. PLoS ONE5, e15077 (2010).
2.Nakano, R., Nakagawa, R., Tokimoto, N. & Okanoya, K. Alarm call discrimination in a social rodent: adult but not juvenile degu calls induce high vigilance. Journal of Ethology31, 115-121 (2013).
3.Xiong, X. R. et al. Auditory cortex controls sound-driven innate defense behaviour through corticofugal projections to inferior colliculus. Nat. Commun.6, 7224 (2015).
4.Wang, H. et al. Direct auditory cortical input to the lateral periaqueductal gray controls sound-driven defensive behavior. PLoS Biol.17, e3000417 (2019).
本文使用的病毒产品,列表如下:
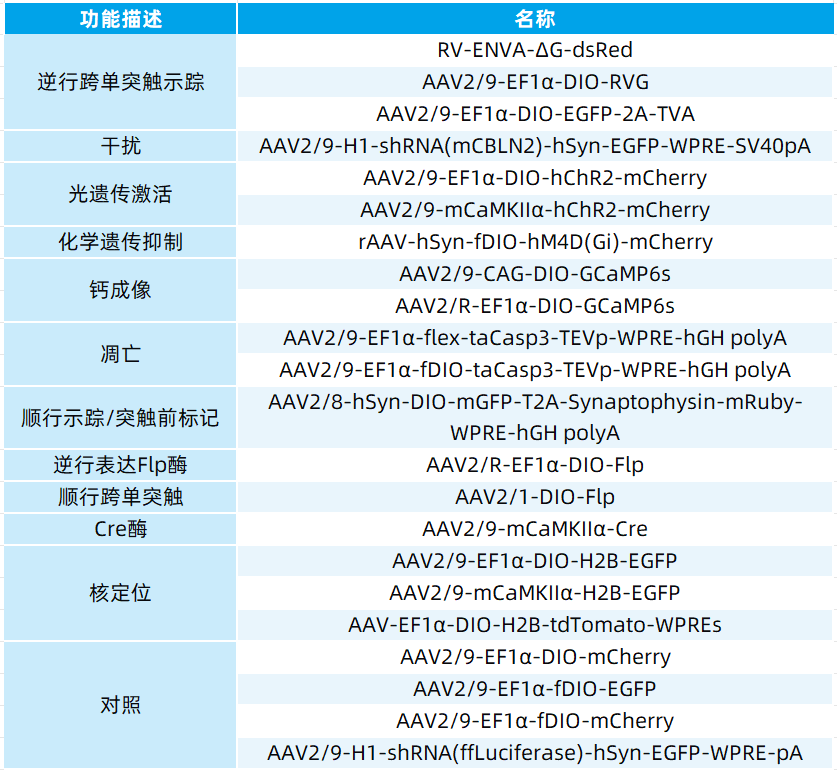
上述病毒产品我司均可提供,欢迎咨询!
如有相关需求,或了解更多产品服务,欢迎咨询我们!点击进入店铺,查看更多产品及服务
