- 移动端

武汉枢密脑科学技术有限公司品牌商
8 年
手机商铺
- NaN
- 0.6000000000000001
- 1.6
- 0.6000000000000001
- 3.6
武汉枢密脑科学技术有限公司
入驻年限:8 年
- 联系人:
枢先生
- 所在地区:
湖北 武汉市 江夏区
- 业务范围:
抗体、试剂、细胞库 / 细胞培养、技术服务、耗材、实验室仪器 / 设备
- 经营模式:
生产厂商 经销商
推荐产品
公司新闻/正文
肿瘤与大脑“串谋”,让抗癌免疫“踩刹车”?IF=48.5【文献解读】Nature:肺癌经迷走感觉-交感神经轴抑制抗癌免疫的机制
101 人阅读发布时间:2026-10-16 16:15
实体瘤受外周神经系统不同分支的支配,神经支配增加与肿瘤侵袭性表型和不良预后相关;然而,大脑如何感知并响应来自外周器官的肿瘤信号、肿瘤-脑通讯又如何塑造癌症免疫,始终缺乏完整的环路解析。
迷走神经是连接内脏与脑的主要内感受系统,对维持机体稳态至关重要;肺内不同亚型的迷走感觉神经元(VSN)分别感知不同肺信号并参与呼吸调控,其末梢释放的神经肽也能调节免疫应答。但肿瘤是否劫持这条“肺-脑”内感受通路,以及传入-传出环路如何影响癌症进展,此前并不清楚。
本研究以肺腺癌(LUAD)为模型,整合基因工程小鼠模型(KP自发肺癌模型与KP细胞尾静脉注射移植模型)、神经示踪(AAV顺行/逆行示踪)、三维组织成像、单细胞转录组、遗传消融(LSL-DTR/白喉毒素DT)、化学遗传学(DREADD)与药理学干预,系统回答两个递进的问题:第一,肿瘤诱导的迷走感觉神经支配是否具有功能必要性;第二,若存在脑参与的反射通路,其传入端(感觉神经)、中继站(脑干核团)与传出端(交感神经)分别对应哪些神经解剖学结构,下游效应又如何转化为免疫微环境的重塑。本文中的KP细胞系来源于KP小鼠自发产生的肺腺癌,遗传背景为KrasG12D激活合并p53缺失,低代次保存,用于体外实验和尾静脉移植。体外实验中的“肿瘤细胞”如无特别说明,均指KP肿瘤细胞;肿瘤外植体上清(TES)来自KP小鼠自发肺肿瘤组织,LES来自健康小鼠肺组织。
本研究鉴定出一条由迷走感觉-交感神经轴介导的双向肿瘤-脑通讯环路:LUAD主动诱导迷走感觉神经的神经支配与功能活化,其中NPY2R(神经肽Y受体2型)/TRPV1(瞬时受体电位香草酸亚型1,即辣椒素受体)双阳性迷走感觉神经将肿瘤信号传至脑干核团,进而上调肿瘤微环境(TME)中的交感神经传出活动;后者经肺泡巨噬细胞(AM)的β2 adrenaline能(ADRB2)信号抑制抗肿瘤免疫,形成免疫抑制性肿瘤微环境并促进肿瘤发生。通过遗传学、药理学或化学遗传学手段中断这一“感觉传入-交感传出”通路,可显著增强机体抗肿瘤免疫应答并抑制肺肿瘤生长。综上,迷走感觉传入与交感输出构成一条协同调控抗癌免疫的双向环路,靶向该环路有望为内脏器官肿瘤提供新的治疗策略。
(一)LUAD被迷走感觉神经支配,肿瘤主动分泌NGF招募神经
研究者以Ad5mSPC-Cre腺病毒(5型复制缺陷型腺病毒,mSPC启动子驱动Cre,气管滴注后主要感染II型肺泡上皮细胞)气管滴注KP小鼠(KrasLSL-G12D/wt;p53fl/fl双转基因小鼠,Cre介入后同时激活癌基因Kras突变,并敲除抑癌基因p53),原位诱导自发LUAD。三维组织成像显示,TUBB3⁺(βIII微管蛋白,泛神经元标志)神经纤维贯穿并包裹肿瘤团块,BAF53b⁺(泛神经元标志)与VGLUT2⁺(兴奋性感觉传入标志)感觉神经在肿瘤区的密度均显著高于邻近健康肺泡;在迷走结状神经节(VNG)注射AAV9-CAG-GFP顺行示踪,可见GFP⁺迷走感觉神经纤维进入肺肿瘤,表明LUAD受VSN支配。
体外实验中,肿瘤外植体上清(TES)、肿瘤细胞条件培养基(TCM)及与肿瘤细胞共培养均显著促进VSN神经突生长,而健康肺上清无此效应,热灭活TCM后效应显著减弱;晚期肿瘤细胞中NGF(神经生长因子)等神经营养因子表达上调,用lentiCRISPR慢病毒敲除肿瘤细胞NGF后,其促神经生长能力显著下降。单细胞转录组显示,肺支配VSN(Kcng1⁺簇6)在荷瘤后发生最显著的转录重编程,感觉功能相关基因(Npy1r、Calca)、免疫应答相关基因(Ifi27l2a、Tifa)及神经生长相关基因(Bdnf)均上调。这表明:肿瘤不是被动等待神经长入,而是主动分泌NGF等因子招募迷走感觉神经。
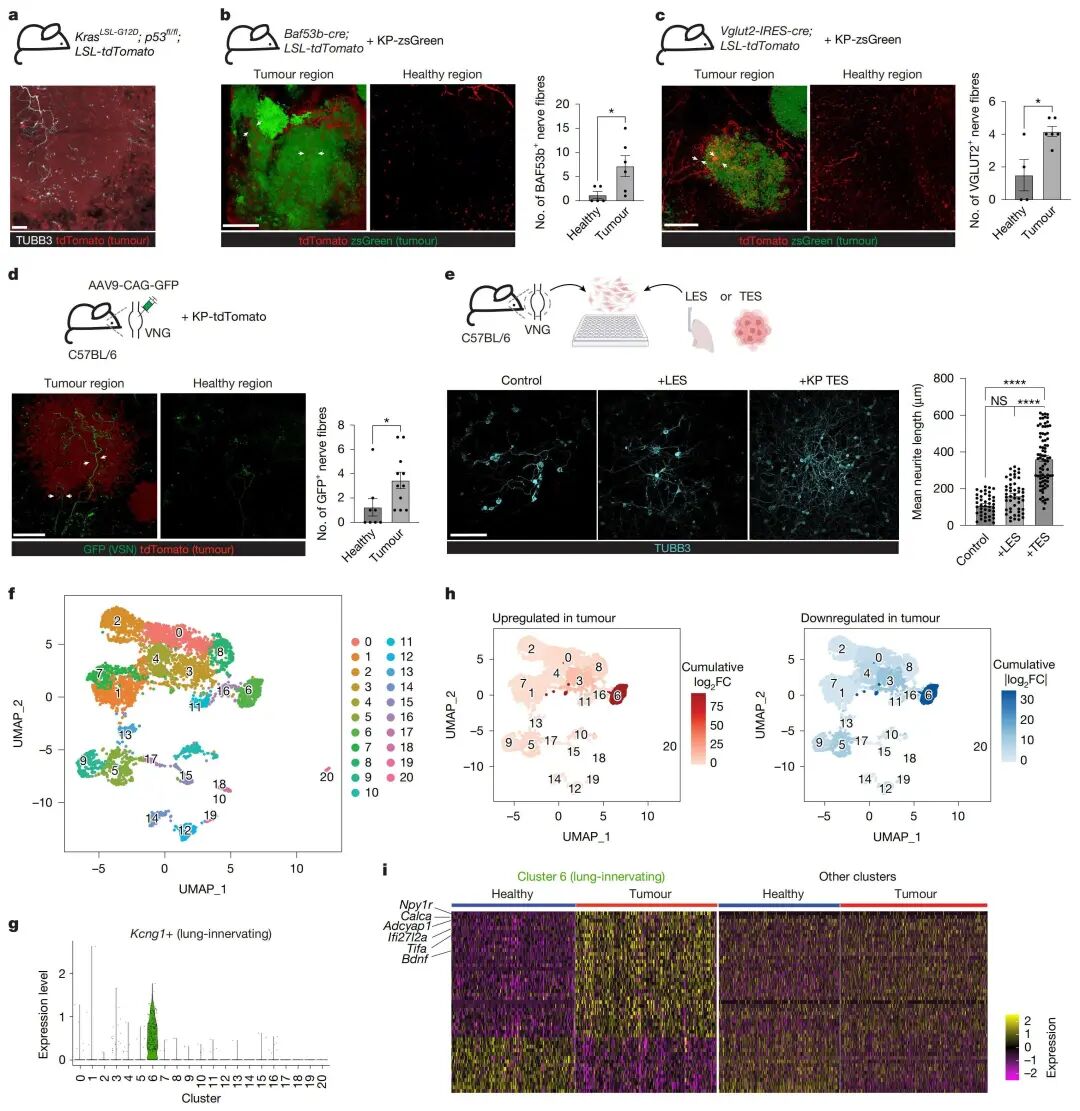
图1 LUAD受VSN支配
(二)NPY2R⁺/TRPV1⁺迷走感觉神经元亚群促进肿瘤生长
用AAV9-CAG-flex-tdTomato(Cre依赖表达tdTomato的顺行示踪AAV)在VNG顺行示踪各亚群:仅Npy2r⁺(而非P2ry1⁺,P2Y1受体阳性、主要支配神经上皮小体)纤维及Trpv1⁺(辣椒素受体阳性)纤维进入肺肿瘤;RNAscope原位杂交显示,VNG中约89%的Npy2r⁺神经元共表达Trpv1(77%的Trpv1⁺神经元共表达Npy2r),构成“迷走NPY2R/TRPV1神经元”这一功能类群。
为验证其功能必要性,利用LSL-DTR小鼠(Rosa26敲入loxP-stop-loxP-DTR元件,仅Cre⁺细胞表达人源白喉毒素受体,注射DT即可杀死特定神经元)在VNG定向注射DT消融相应亚群:消融Npy2r⁺或Trpv1⁺VSN使肺肿瘤负荷显著降低,消融P2ry1⁺亚群则无效果;同一DT剂量下Trpv1-cre;LSL-DTR小鼠肿瘤负荷显著低于Cre阴性的LSL-DTR同窝对照,排除了DT的非特异效应。KP自发模型中消融Trpv1⁺VSN同样抑瘤,并降低高级别腺癌比例。化学遗传学结果与之互相印证:在Trpv1-cre小鼠气管滴注AAVretro-hSyn-flex-hM4Di(逆行AAV自肺末梢逆行至胞体,CNO给药抑制神经元放电),同样显著抑瘤;VNG内注射RTX化学消融(树脂毒素,TRPV1激动剂,可化学消融TRPV1⁺神经元)有效,而鞘内RTX(仅消融背根神经节传入)无效,证明起效的是迷走传入而非脊髓传入。消融还延长荷瘤鼠中位生存,减轻肿瘤相关体重下降,并改善行为状态;非小细胞肺癌(NSCLC)患者数据中TUBB3、TRPV1、UCHL1(编码PGP9.5,泛神经元标志)表达均与总生存呈负相关。
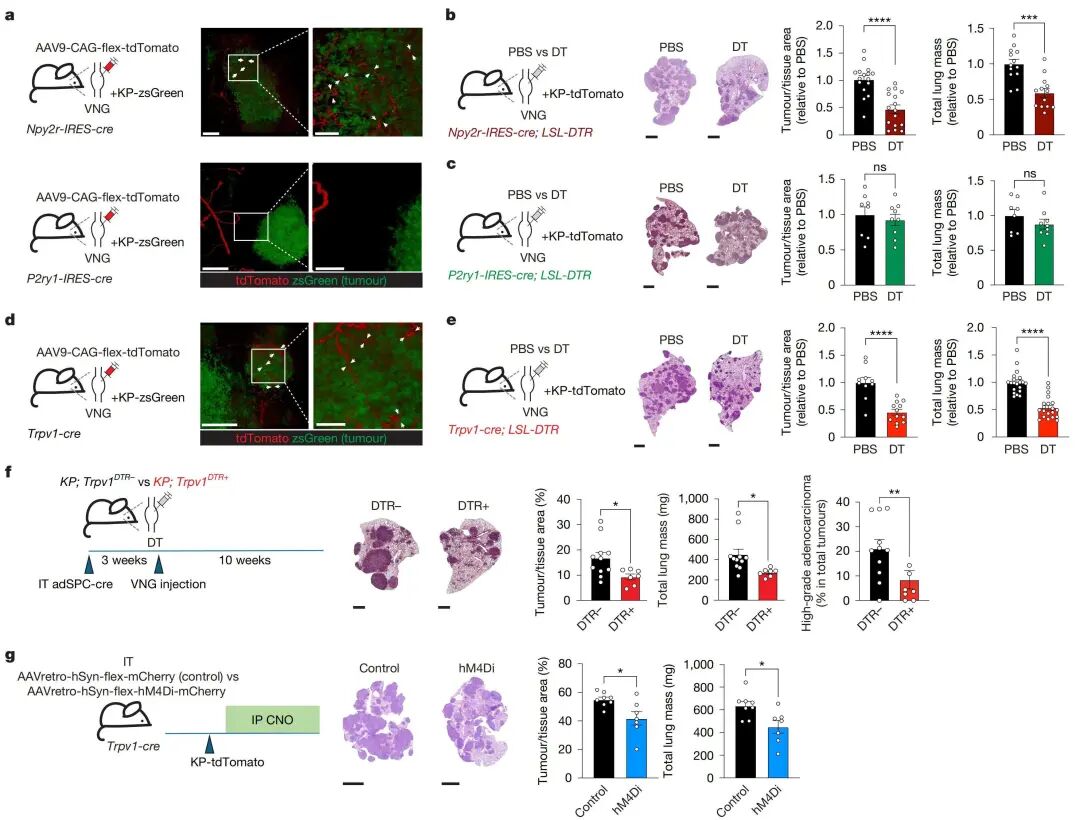
图2 迷走NPY2R/TRPV1神经元促进LUAD生长
(三)感觉神经经肺泡巨噬细胞抑制T细胞免疫
Ce3D三维成像显示,CD11c⁺(髓系/树突细胞标志)髓系细胞与CD3⁺(T细胞标志)T细胞富集于肿瘤支配神经周围,提示神经与免疫细胞在空间上邻近。抗体清除CD4⁺/CD8⁺T细胞后,消融VSN的抑瘤效应完全消失,提示神经通过免疫系统发挥作用。高维流式细胞术显示,消融NPY2R⁺或TRPV1⁺VSN后,肿瘤组织和引流淋巴结中IFN-γ⁺CD4⁺T细胞、IFN-γ⁺TNF⁺CD8⁺T细胞丰度显著升高,肿瘤内CD8⁺T细胞密度增加;同时肺泡巨噬细胞中ARG1(精氨酸酶1,免疫抑制标志)下降、MHC-II(主要组织相容性复合体II类分子,抗原提呈标志)上升,而脾脏T细胞无变化,作用局限于肺局部。
关键的因果验证:气管内滴注Chlorophosphonate脂质体清除肺驻留肺泡巨噬细胞后,再消融TRPV1⁺VSN,肿瘤不再明显缩小;而缺失cDC1(1型经典树突状细胞,专职向CD8⁺T细胞交叉提呈抗原)不影响消融效应。这表明肺泡巨噬细胞是神经“免疫抑制指令”的必经中转站——若无肺泡巨噬细胞,神经信号便无法传递至T细胞。
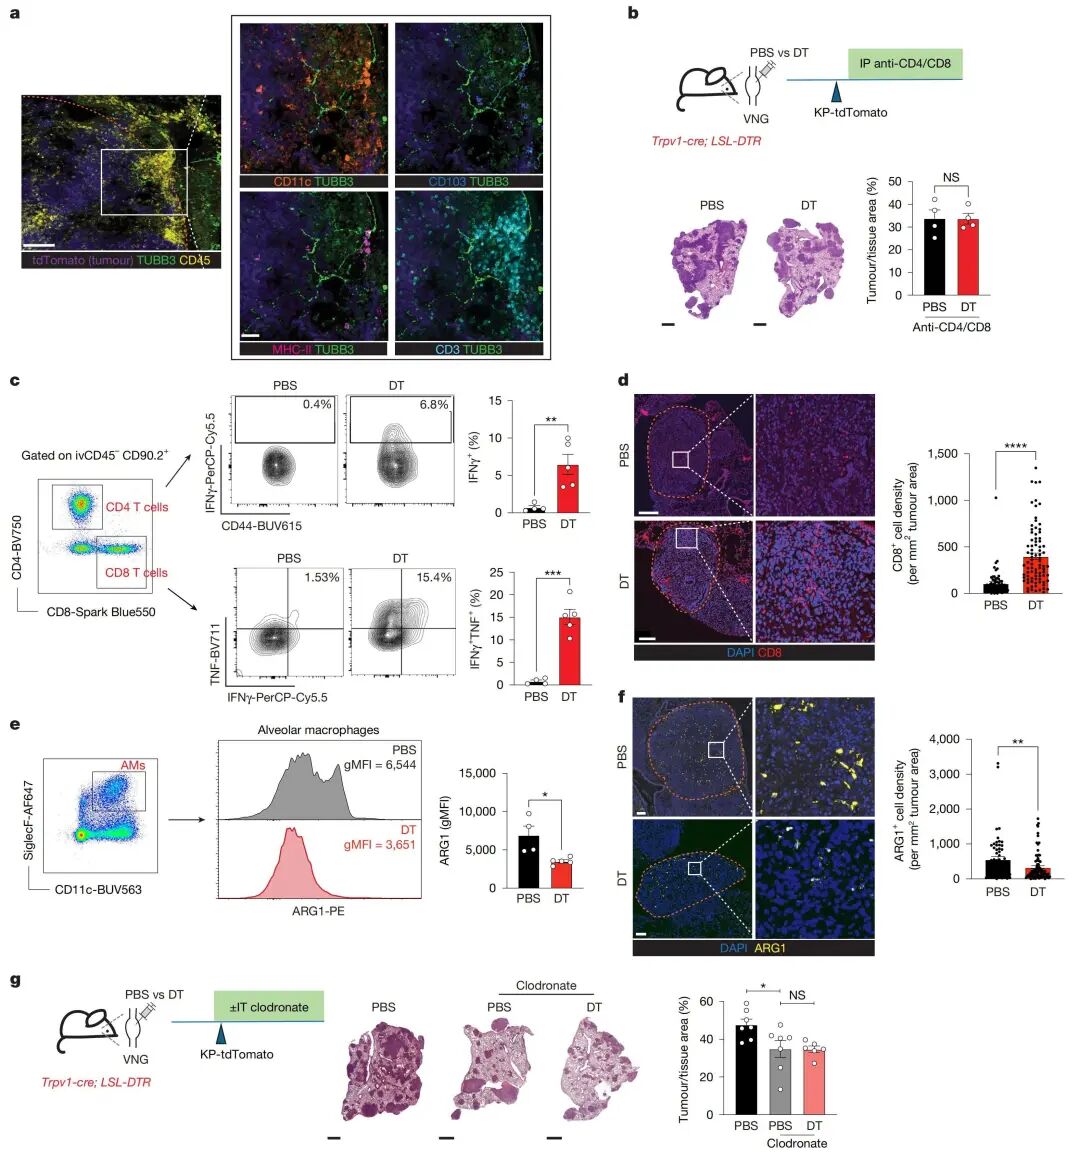
图3 迷走NPY2R/TRPV1神经元抑制抗肿瘤免疫
(四)迷走感觉传入经RVLM驱动交感传出
CGRP(降钙素基因相关肽)受体拮抗剂(BIBN4096)在多种给药方案下均不影响肿瘤生长,排除了局部神经肽反射,提示存在中枢参与的长程反射通路。化学遗传激活支配肺的Trpv1⁺VSN,可在健康及荷瘤小鼠中诱导孤束核(NTS)与延髓头端腹外侧区(RVLM,脑干交感中枢)FOS(即刻早期基因,神经元活动标志)表达,表明肿瘤劫持了原有的“VSN→脑干”通路。
环路解剖学验证:消融VSN后,RVLM中VGLUT2⁺(Slc17a6⁺)前交感神经元Fos⁺比例大幅下降,胸段(T3-5)交感神经节FOS同步减少;反向实验显示,化学遗传激活RVLM的VGLUT2⁺神经元可显著增加胸交感神经节神经元活动。关键功能验证:在Vglut2-cre小鼠RVLM立体定位注射Cre依赖的抑制型DREADD(AAV-DIO-hM4Di),CNO抑制RVLM谷氨酸能神经元后肿瘤负荷显著降低——RVLM是这条反射弧上不可或缺的功能节点。传出端:消融后肿瘤周围TH⁺(酪氨酸羟化酶,交感神经标志)交感纤维密度下降、肺组织(NE)含量降低,而VAChT⁺(囊泡乙酰胆碱转运体,副交感神经标志)副交感纤维不变,确认通路为“感觉-交感”特异性;在肿瘤尚未缩小的早期时间点环路改变即已出现,排除了继发效应。癌症基因组图谱数据库(TCGA)分析显示,LUAD患者中VSN与交感神经联合特征基因(PHOX2B、SLC17A6、SYN1、NPY2R、TRPV1、TH、DBH)高表达与生存缩短、CD8⁺T细胞浸润减少相关。
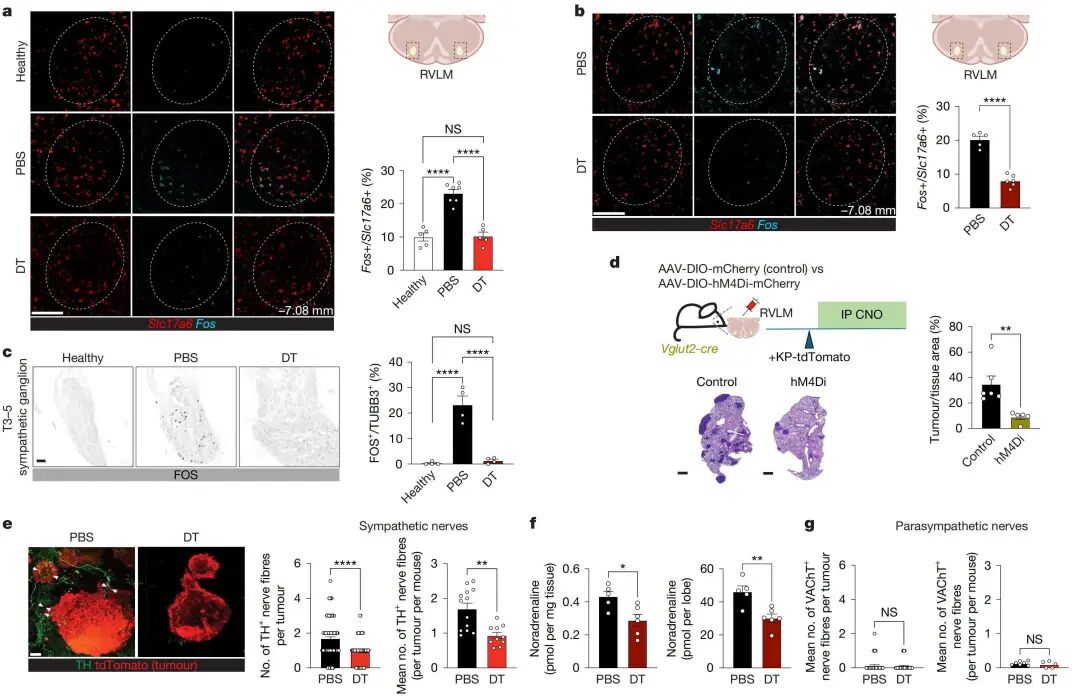
图4 VSN介导的内感受通路驱动肺肿瘤微环境中的交感传出活动
(五)交感NE经肺泡巨噬细胞ADRB2抑制免疫
雾化吸入沙丁胺醇(ADRB2选择性激动剂)使VSN缺失小鼠的肿瘤负荷恢复至接近VSN完整小鼠的水平,并逆转VSN消融引起的肺泡巨噬细胞与T细胞表型变化;NE对KP肿瘤细胞体外无直接促增殖作用,提示其作用靶点不在肿瘤细胞本身。Adrb2−/−小鼠肿瘤负荷显著低于野生型,且呈现ARG1⁺巨噬细胞减少、抗肿瘤T细胞增多;在ADRB2缺失背景下再消融TRPV1⁺VSN,肿瘤不再额外缩小。ADRB2是该轴下游的关键效应节点,阻断ADRB2可消除VSN-交感轴对肿瘤免疫的抑制效应。
骨髓嵌合实验证明造血系ADRB2缺失即可增强抗肿瘤免疫并抑瘤,且与VSN消融呈上位效应;体外实验中,NE显著上调野生型肺泡巨噬细胞Arg1表达,而Adrb2−/−巨噬细胞不响应;肿瘤相关肺泡巨噬细胞特异性高表达Adrb2(不表达其他adrenaline受体,表达量亦高于CD8⁺T细胞),NE不改变CD8⁺T细胞体外杀伤能力。混合骨髓嵌合将ADRB2缺失限定于肺泡巨噬细胞后,足以使肺泡巨噬细胞表型正常化,并消除Npy2r⁺VSN消融引起的T细胞刺激和抑瘤效应;Chlorophosphonate清除巨噬细胞在Adrb2−/−小鼠中不再有额外作用。这些结果完整证实“VSN→交感→NE→巨噬细胞ADRB2→抑制T细胞”为核心效应通路。
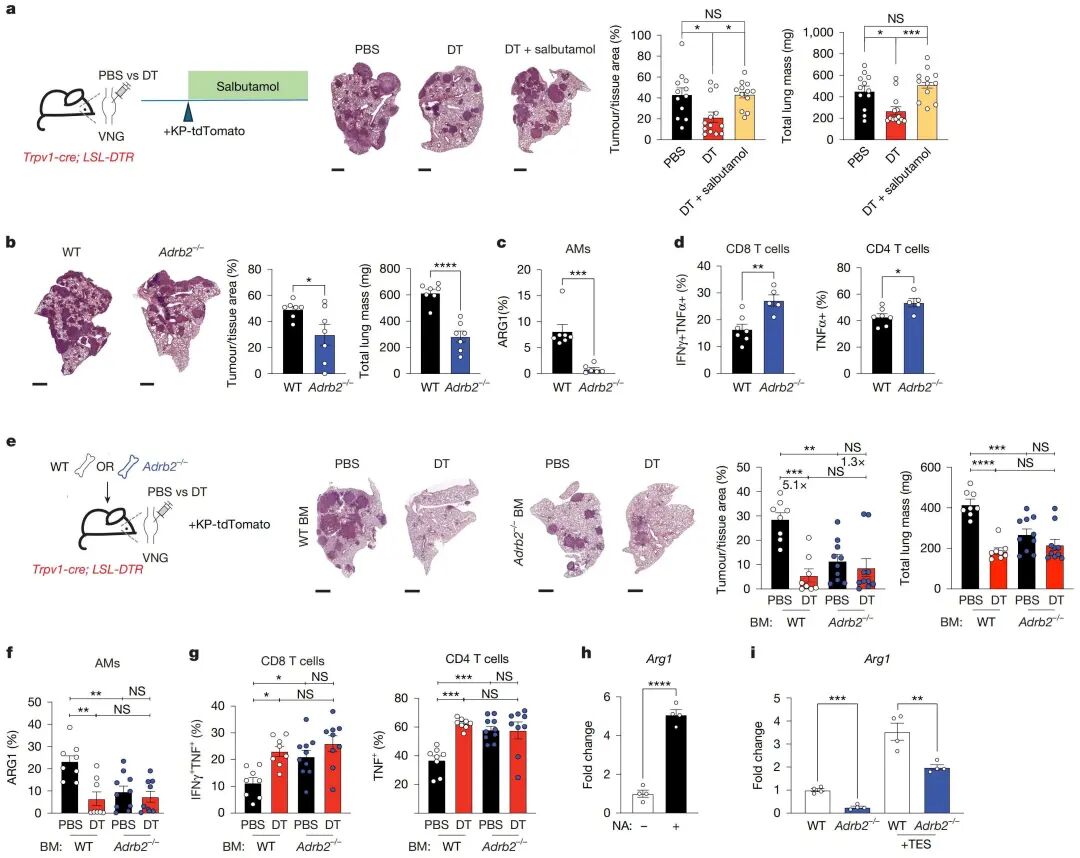
图5 迷走感觉-交感轴经肺泡巨噬细胞β2 adrenaline能(ADRB2)信号抑制抗肿瘤免疫
完整机制构成一条双向反射弧:肺肿瘤细胞分泌NGF招募并激活NPY2R⁺/TRPV1⁺迷走感觉神经元→感觉信号经孤束核中继上传至RVLM→RVLM谷氨酸能前交感神经元驱动交感神经兴奋→交感神经末梢释放NE→NE结合肺泡巨噬细胞上的ADRB2→巨噬细胞向ARG1⁺免疫抑制表型极化→抑制CD8⁺/CD4⁺抗肿瘤T细胞应答→肿瘤逃避免疫监视。
这不是单向的“神经影响肿瘤”,而是肿瘤主动劫持的双向环路:肿瘤先利用神经作为传声筒,借中枢的交感输出反过来压制局部免疫。与感觉神经末梢直接释放神经肽的急性局部反射不同,该机制不同于局部反射:亚型特异性VSN感知肿瘤引起的持续性组织微环境变化,再经脑调节交感传出张力,属于长程反射;该轴在健康肺中即已存在(光遗传激活Npy2r⁺VSN可诱发快速浅呼吸,该反应与交感活动升高相关),肿瘤正是劫持了这一内感受机制来逃避免疫监视。靶向该环路的多个关键节点(VSN、RVLM或ADRB2)均可增强抗肿瘤免疫并抑制肿瘤生长。
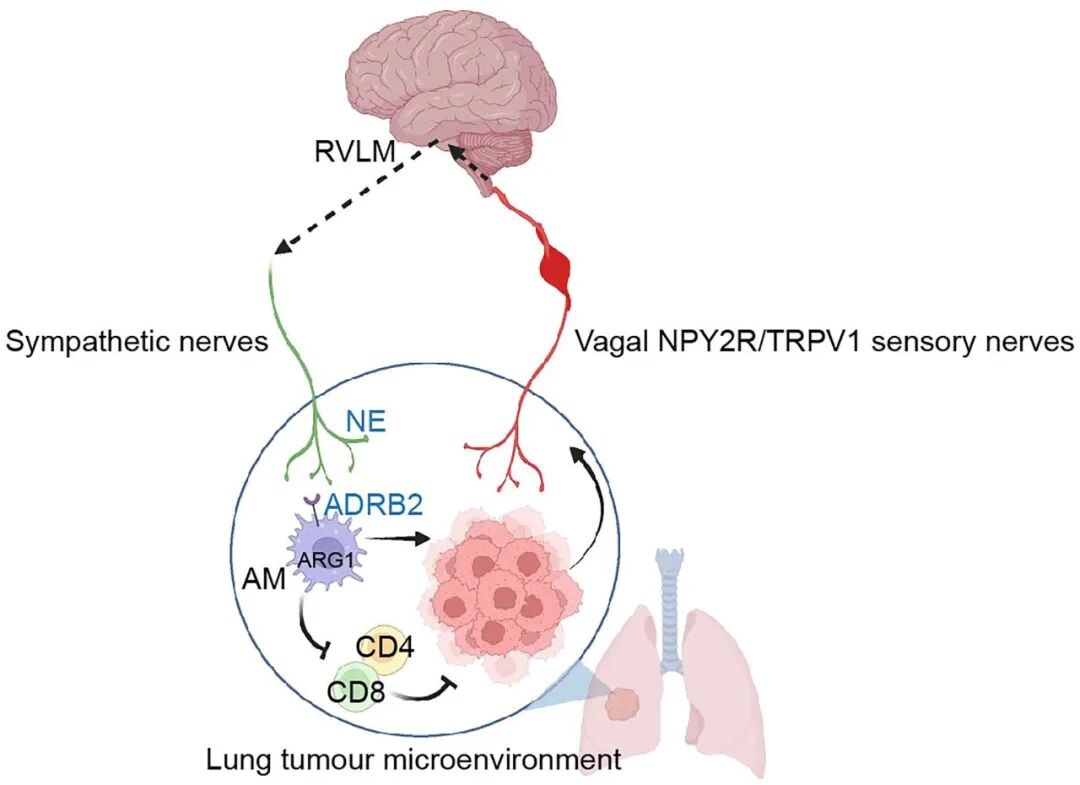
图6 迷走感觉-交感轴介导的肺肿瘤-脑双向串扰机制模型
本文使用的病毒产品,列表如下:
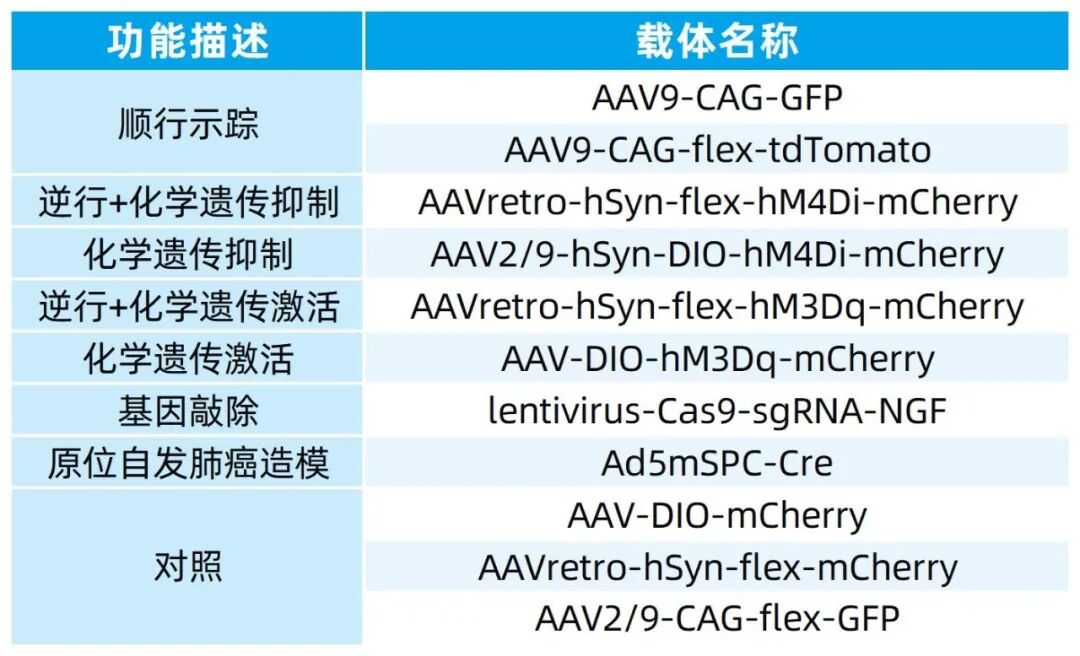
上述病毒产品我司均可提供,欢迎咨询!
如有相关需求,或了解更多产品服务,欢迎咨询我们!点击进入店铺,查看更多产品及服务
