- 移动端
武汉枢密脑科学技术有限公司品牌商
8 年
手机商铺
- NaN
- 0.6000000000000001
- 1.6
- 0.6000000000000001
- 3.6
武汉枢密脑科学技术有限公司
入驻年限:8 年
- 联系人:
枢先生
- 所在地区:
湖北 武汉市 江夏区
- 业务范围:
抗体、试剂、细胞库 / 细胞培养、技术服务、耗材、实验室仪器 / 设备
- 经营模式:
生产厂商 经销商
推荐产品
公司新闻/正文
【客户文章】APS︱徐医大肖诚教授/周春艺教授团队揭示外侧臂旁核→丘脑底旁核投射通过P物质-NK1R信号通路参与神经病理性疼痛
218 人阅读发布时间:2026-09-22 16:46
撰文︱饶 芳
审阅︱肖诚,周春艺
慢性疼痛是一种持续性病理状态,严重影响着患者的生存质量,平均患病率在10%-30%间,是全球重要的疾病负担。深入解析疼痛调控相关的中枢神经环路、细胞类型和受体机制,有望为疼痛治疗提供潜在干预靶点和新的治疗策略。丘脑底旁核(parasubthalamic nucleus,PSTN)位于下丘脑的外侧,主要由谷氨酸能神经元组成,是内脏机能状态和情感动机调控网络的关键节点,但PSTN在疼痛感知和调控中的作用还不清楚。外侧臂旁核(lateral parabrachial nucleus,LPB)参与躯体感觉和内脏痛信号的传导和处理,PSTN接受LPB的大量投射,但尚不清楚LPB-PSTN投射是否及如何调控疼痛。回答这些问题,可以为疼痛及相关负性情绪治疗措施的改进提供理论依据。
徐州医科大学肖诚教授、周春艺教授团队与新疆医科大学附属第三医院王天海主任医师合作的研究成果“Enhanced substance P-NK1R signaling in the parabrachial-parasubthalamic pathway promotes hyperalgesia and affective aversion in neuropathic pain”于近日在线发表在《Acta Pharmacologica Sinica》上[1]。本文揭示了PSTN神经元接受来自LPB中表达速激肽前体1(Tac1)神经元[可释放P物质(SP)等速激肽]的谷氨酸能单突触投射,这一投射可通过激活PSTN中的谷氨酸受体和神经激肽1受体(NK1R)而兴奋PSTN神经元。抑制LPB-PSTN投射或阻断PSTN中的NK1R均能有效地缓解痛觉过敏和诱导条件位置偏好。这些结果提示LPB-PSTN投射和PSTN中的SP-NK1R信号通路是治疗神经病理性疼痛的潜在靶点。
1、SNI小鼠PSTN神经元对机械刺激和热刺激的反应增强
为了探究PSTN神经元对疼痛刺激的反应,作者将腺相关病毒AAV-CaMKII-GCaMP6f或AAV-CaMKII-eYFP注射到PSTN中,并植入光纤,同时,还建立了坐骨神经保留性损伤(SNI)的神经病理性疼痛小鼠模型(图1a,b)。SNI小鼠对疼痛刺激产生超敏反应,机械痛和热痛阈值显著降低,假手术组小鼠未出现疼痛超敏反应(图1c,d)。光纤成像结果显示,在假手术组和SNI组小鼠中,阈上机械痛刺激和热痛刺激均能引起PSTN神经元GCaMP6f信号的短暂增强(图1e-p),并且,SNI小鼠PSTN GCaMP6f信号对阈上疼痛刺激的响应峰值显著高于假手术组小鼠。另外,本研究还利用Fos-TRAP(活性神经元群体靶向重组)技术标记阈上疼痛刺激激活的PSTN神经元,发现阈上刺激在SNI小鼠激活的PSTN神经元数目显著多于假手术组小鼠(见全文)。这些数据表明,在神经病理性疼痛条件下,阈上疼痛刺激会激活更多的PSTN CaMKII神经元,这些神经元会表现出更强烈的疼痛反应。
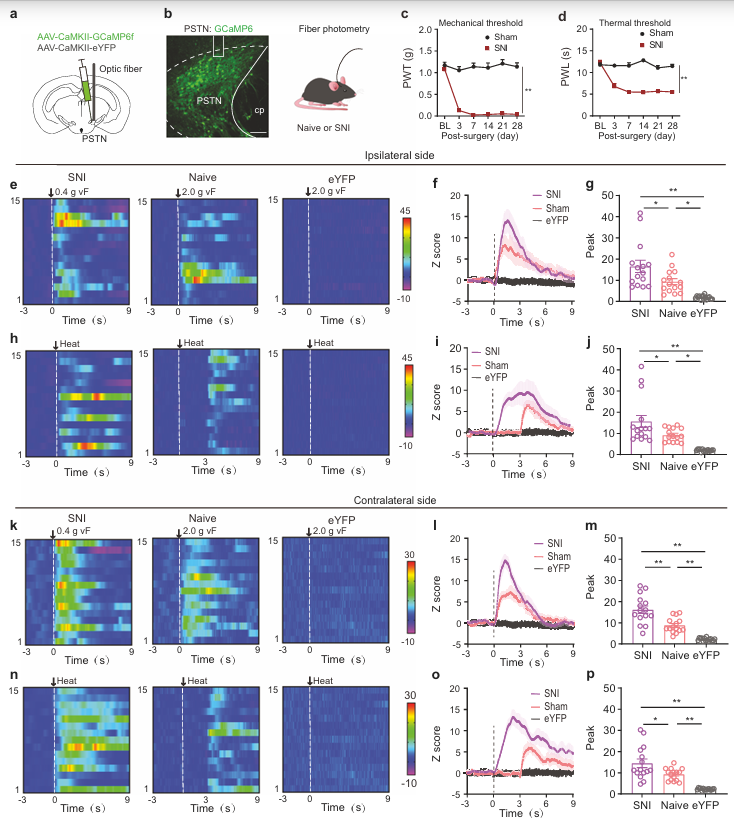
图1:假手术组小鼠和SNI组小鼠通过疼痛刺激激活PSTN神经元。(a-b)PSTN钙成像病毒注射与光纤植入示意图。(c-d)神经病理性疼痛模型验证。(e-j)同侧SNI组、假手术组和对照组小鼠PSTN神经元对机械痛和热痛的反应。(k-p)对侧SNI组、假手术组和对照组小鼠PSTN神经元对机械痛和热痛的反应。* P<0.05;** P<0.01。
2、抑制PSTN CaMKII神经元减轻SNI小鼠痛觉过敏和厌恶情绪
为了检测PSTN CaMKII神经元的过度活跃是否与SNI小鼠痛觉过敏相关,作者用AAV-CaMKII-NpHR-eYFP标记PSTN CaMKII神经元(图2a)。借助膜片钳技术观察到,黄光刺激使表达NpHR的PSTN CaMKII神经元发生超极化,同时,也抑制了PSTN神经元的放电(图2b)。接下来的疼痛行为测试显示,在生理条件下,用黄光抑制PSTN神经元时,NpHR组和eYFP组假手术小鼠双侧后足足底机械痛和热痛阈值未发生显著改变(图2c-f)。但在SNI小鼠中,黄光抑制PSTN神经元时,NpHR组小鼠机械痛和热痛阈值显著升高(图2g,h)。这些数据表明,PSTN CaMKII神经元的过度活跃可能参与神经病理性疼痛痛觉过敏相关的病理生理过程。
SNI小鼠存在持续性疼痛伴随负性情绪的表型。在慢性疼痛模型中,疼痛的缓解可起到类似奖赏的效应,也可减轻负性情绪[2]。为了探讨在SNI小鼠中PSTN是否参与负性情绪调控,作者对接受SNI手术的NpHR和eYFP组小鼠做了条件位置偏好实验,将黄光抑制PSTN神经元与测试箱体某一侧相匹配(图2i)。结果显示,NpHR组小鼠在给光侧停留的时间明显增加,而eYFP组小鼠在训练前后的偏好行为未发生改变(图2j-l)。说明抑制PSTN CaMKII神经元可以缓解神经病理性疼痛和厌恶样反应。这些结果提示,PSTN CaMKII神经元兴奋性增高是神经病理性疼痛的重要病理生理机制。
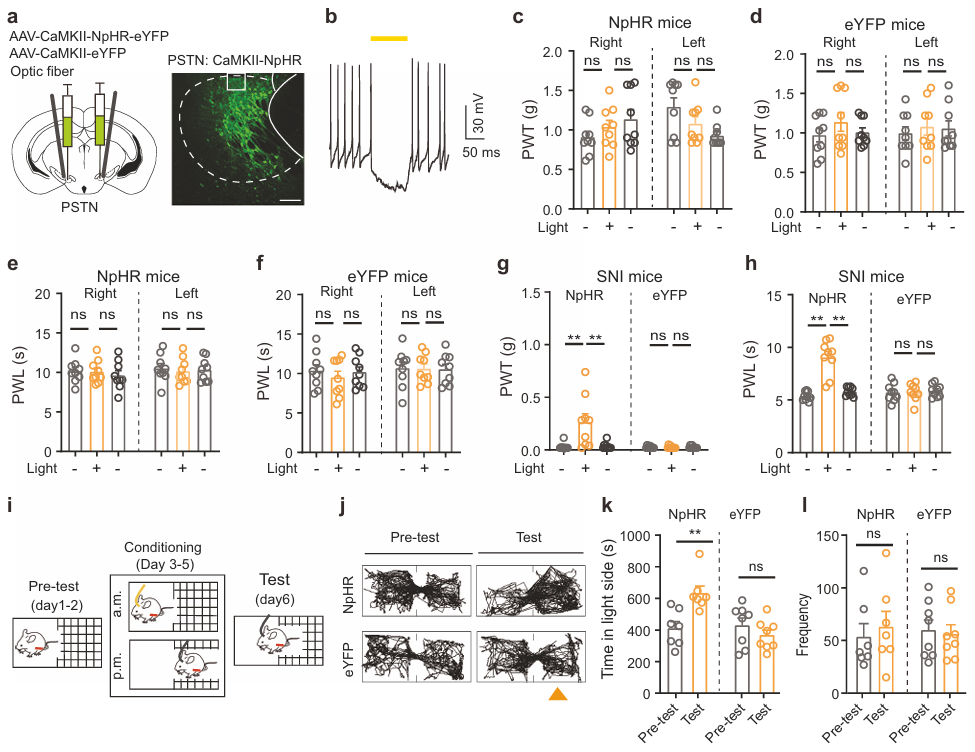
图2:光遗传学抑制PSTN神经元显著缓解SNI小鼠的疼痛和厌恶行为。(a)光遗传学病毒注射及表达示意图。(b)膜片钳记录黄光刺激表达NpHR的PSTN神经元的细胞反应。(c-f)假手术小鼠双侧机械痛和热痛阈值在光遗传学抑制PSTN神经元时的变化。(g-h)SNI组小鼠双侧机械痛和热痛阈值在光遗传学抑制PSTN神经元时的变化。(i-l)SNI组小鼠条件位置偏好实验流程图及结果。* P<0.05;** P<0.01;ns:无统计学差异。
3、LPB通过兴奋性单突触输入支配PSTN神经元,并驱动小鼠产生厌恶情绪
由于PSTN并不是经典疼痛传导通路的组成部分,作者采用逆向示踪和电生理技术发现这些神经元接受LPB的投射,为了确认LPB-PSTN投射是否调控疼痛,作者将AAV-CaMKII-ChR2-eYFP注入LPB(图3a-b),5-6周后,用膜片钳技术在急性脑片中发现,蓝光刺激可在LPB神经元上诱发出动作电位(图3c),在PSTN神经元上诱发出兴奋性突触后电流(EPSC),并通过药理学实验证明了该 EPSC 为单突触谷氨酸能电流(图3d-e)。在行为检测中,作者发现激活LPB-PSTN投射不影响假手术小鼠的机械痛和热痛阈值(图3f-i)。作者又将小鼠放入条件位置偏好测试箱中进行实时位置偏好(RTPP)实验(图3j),小鼠在测试箱中自由穿梭,当小鼠进入测试箱某一侧时即给予蓝光刺激激活LPB-PSTN投射,在小鼠退出光照侧进入另一侧后,即停止光照。相对于eYFP小鼠,ChR2小鼠表现出对光照侧的回避反应(图3k-m)。这些数据表明,在生理状态下,激活LPB-PSTN投射虽然不影响疼痛阈值,但足以引起厌恶情绪。
随后作者通过膜片钳纪录技术发现,LPB-PSTN投射在神经病理性疼痛中显著增强,表现为AMPA受体和NMDA受体介导的EPSC大小比值不变(图3n,o),AMPA受体介导的EPSC峰值增加(图3p,q),而配对脉冲比(paired pulse ratio,PPR)减小(图3r)。这些结果提示,增加突触前递质释放概率是SNI增强LPB-PSTN投射的重要机制。
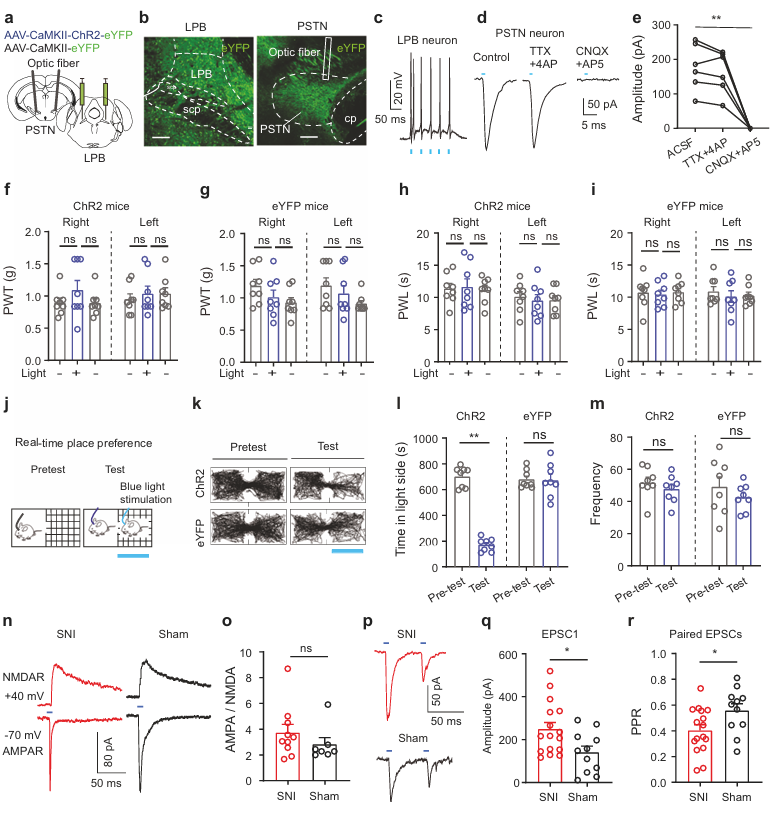
图3:在假手术小鼠中,光遗传激活LPB-PSTN谷氨酸能通路在不改变机械痛和热痛阈值的情况下驱动厌恶。(a、b)光遗传学病毒注射及表达示意图。(c-e)膜片钳技术记录LPB和PSTN神经元放电情况和突触后电流。(f-i)激活LPB-PSTN神经通路对假手术小鼠机械痛和热痛阈值的影响。(j-m)实时位置偏好实验。在小鼠进入箱体某一侧即给予光遗传学刺激LPB-PSTN投射前后,观察小鼠在光刺激侧停留的时间。(n-r)蓝光刺激LPB-PSTN投射可在假手术组小鼠和SNI组小鼠的PSTN神经元中诱发EPSCs。* P<0.05;** P<0.01;ns:无统计学差异。
4、抑制LPB-PSTN投射减轻SNI小鼠痛觉过敏并诱发条件位置偏好
为了探究抑制LPB-PSTN投射是否可以减轻神经病理性疼痛中的痛觉过敏和负性情绪,作者采用光遗传学技术选择性地抑制LPB-PSTN投射,并研究了假手术小鼠和SNI小鼠的疼痛样行为(图4a-b)。结果显示,在假手术小鼠中,黄光照射PSTN并不改变NpHR和eYFP小鼠的机械痛或热痛阈值(图4c-f),也没有引起NpHR和eYFP小鼠对条件位置偏好测试箱两侧的偏爱或厌恶(图4g-j)。相反,在接受SNI手术的NpHR和eYFP小鼠中,黄光照射PSTN显著提高了NpHR小鼠的机械痛和热痛阈值(图4k,l),并使NpHR小鼠产生对条件位置偏好装置中黄光照射侧的偏爱(图4m-p)。因此,抑制LPB-PSTN投射可以减轻SNI小鼠痛觉过敏和厌恶样行为。
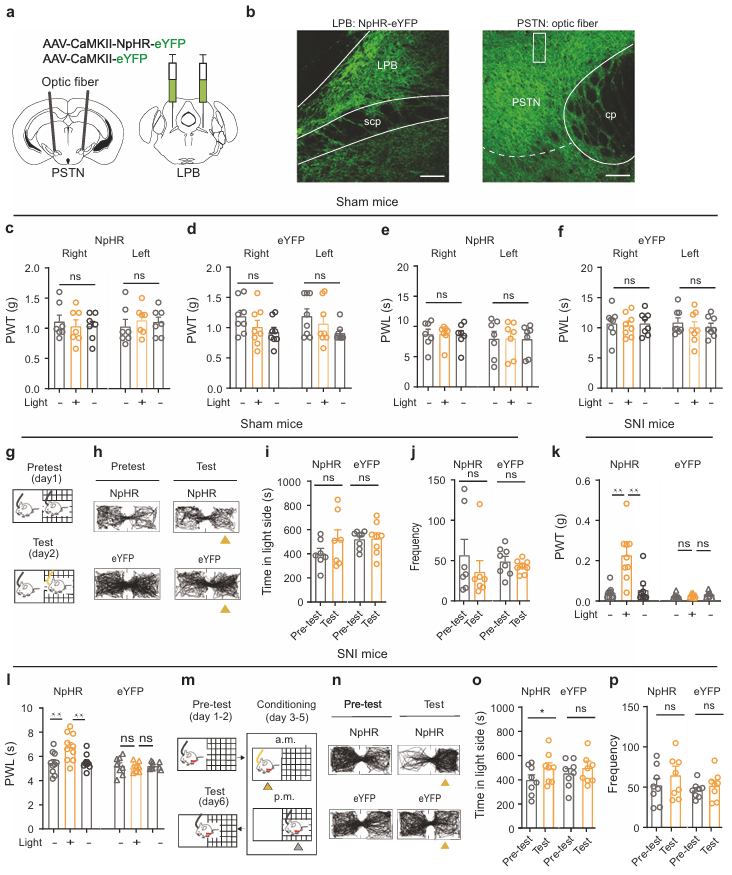
图4:光遗传抑制LPB-PSTN投射可减轻SNI小鼠的痛觉过敏并诱发条件位置偏好。(a-b)病毒注射及表达示意图。(c-f)光遗传学抑制LPB-PSTN投射对假手术小鼠疼痛阈值的影响。(g-j)光遗传学抑制LPB-PSTN投射对假手术小鼠条件位置偏好的影响。(k-l)光遗传学抑制LPB-PSTN投射对SNI小鼠疼痛阈值的影响。(m-p)光遗传学抑制LPB-PSTN投射对SNI小鼠条件位置偏好的影响。* P<0.05;** P<0.01;ns:无统计学差异。
5、LPB-PSTN投射释放的P物质参与PSTN神经元的调控
鉴于LPB谷氨酸能神经元含有Tac1和释放SP,这些神经元参与痛觉调控[3, 4]。为了进一步探究LPB Tac1神经元是否是LPB-PSTN投射的重要来源,作者将逆向示踪病毒注射到PSTN中,以标记PSTN神经元的上游神经元(图5A)。免疫组织化学分析显示,投射到PSTN的LPB神经元中有超过90%含有Tac1(图5B-C)。这说明LPB Tac1神经元是LPB-PSTN投射的主要来源,可能向PSTN释放谷氨酸和SP。
为了检测在神经病理性疼痛条件下,SP在LPB-PSTN投射调控PSTN神经元活动水平中的作用,作者将AAV-CaMKII-ChR2-eYFP注射到LPB中(图5D),并用膜片钳技术记录受LPB神经元支配的PSTN神经元。发现蓝光照射激活LPB-PSTN投射可显著提高这些PSTN神经元的放电频率,该作用可被NK1R拮抗剂(L-733060)所减弱,并可被联合应用L-733060、CNQX和AP5所消除(图5E-F)。因为NK1R是SP激活的主要受体[5],这些结果提示,在神经病理性疼痛条件下,LPB-PSTN投射可以通过释放P物质和谷氨酸,激活NK1R和谷氨酸受体兴奋PSTN神经元。
为了明确激活NK1R是否可以增强PSTN神经元的兴奋性,作者采用全细胞膜片钳记录受LPB支配的PSTN神经元,在施加SP前后向神经元内注射去极化电流,发现SP显著提高了电流注射在PSTN神经元诱发动作电位的发放频率(图5G-H)。这些结果提示,在神经病理性疼痛条件下,NK1R的激活可增强LPB神经元支配的PSTN神经元的兴奋性。进一步的实验显示,抑制NK1R虽然不影响假手术组小鼠受LPB神经元支配的PSTN神经元的兴奋性,但显著降低了SNI小鼠中去极化刺激兴奋PSTN神经元的作用(见全文)。这些数据提示,SNI小鼠PSTN中NK1R激活程度高于假手术组,这与SNI中LPB-PSTN投射增强,SP释放增加的推测相一致。
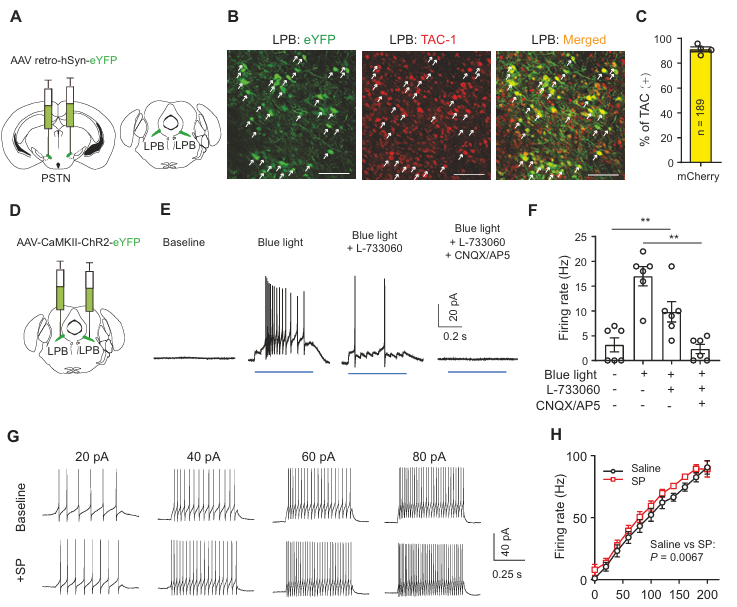
图5:LPB-PSTN投影的功能验证。(A)病毒注射示意图。(B-C)投射到PSTN的LPB神经元的细胞类型鉴定。(D)膜片钳技术病毒注射示意图。(E-F)膜片钳记录LPB神经元支配的PSTN神经元的放电频率在NK1R和谷氨酸受体阻断剂使用前后,受激活LPB-PSTN投射的影响。(G-H)LPB支配的PSTN神经元放电频率受SP的调节作用。* P<0.05;** P<0.01;ns:无统计学差异。
6、阻断PSTN内NK1R可减轻神经病理性疼痛
作者接着经套管将药物注射入PSTN中,以评估PSTN SP-NK1R信号通路在疼痛调控中的作用(图6a,b)。向假手术组小鼠PSTN内注射SP或NK1R拮抗剂(L-733060)并不影响其机械痛和热痛阈值(图6c,d)。而向SNI组小鼠PSTN内注射L-733060则显著提高其对侧后足的机械痛和热痛阈值(图6e,f),并可诱发条件位置偏好(图6g-j);相反,向PSTN内注射SP则不改变SNI小鼠的疼痛阈值(图6e,f)。这些结果与光遗传调控实验的结果相似,表明抑制PSTN中的NK1R可以缓解神经病理性疼痛中的痛觉过敏和厌恶样行为。
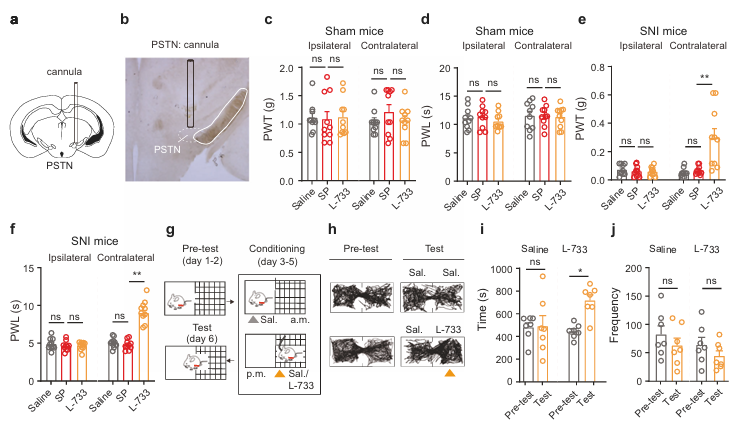
图6:SP-NK1R信号对SNI小鼠痛阈值和条件位置偏好的影响。(a-b)PSTN套管植入示意图。(c-d)向假手术组小鼠PSTN内注射SP、L-733060和生理盐水(saline)对疼痛阈值的影响。(e-f)向SNI组小鼠PSTN内注射SP、L-733060和生理盐水对疼痛阈值的影响。(g-j)向SNI小鼠PSTN内注射L-733060对条件位置偏好的影响。* P<0.05;** P<0.01;ns:无统计学差异。
为了探讨抑制LPB-PSTN投射引起SP释放的减少是否参与了改善神经病理性疼痛的效应,作者应用化学遗传学技术抑制LPB-PSTN投射,并在有或无经套管向PSTN中注射SP两种情况下,观察LPB-PSTN投射对疼痛阈值和厌恶样行为的影响(图7a,b)。在SNI小鼠中,通过向PSTN内注射CNO抑制LPB-PSTN投射显著提高机械痛和热痛阈值(图7c,d),并诱导条件位置偏好(图7e-g)。然而,在PSTN同时注射SP和CNO的SNI小鼠中,没有观察到CNO对疼痛阈值和条件位置偏好的影响(图7c-h)。这些数据表明,抑制LPB-PSTN投射后,神经病理性疼痛中SP释放减少有助于改善疼痛行为。
与PSTN神经元的光遗传抑制结果一致,当作者用化学遗传学技术抑制PSTN神经元时,假手术组小鼠的疼痛阈值没有发生变化(图7k,l);但SNI组小鼠的机械痛和热痛阈值显著升高(图7m,n),并诱发了条件位置偏好(图7o-r)。将SP和CNO共同注入PSTN既不改变机械痛和热痛阈值,也不诱导条件位置偏好(图7m-r)。因此,PSTN中NK1R的激活抵消了PSTN神经元对神经病理性疼痛中痛觉过敏和厌恶样行为的抑制作用。综上,图7中的数据表明,PSTN中NK1R的激活可抵消抑制LPB-PSTN投射和PSTN神经元缓解神经病理性疼痛的效应。
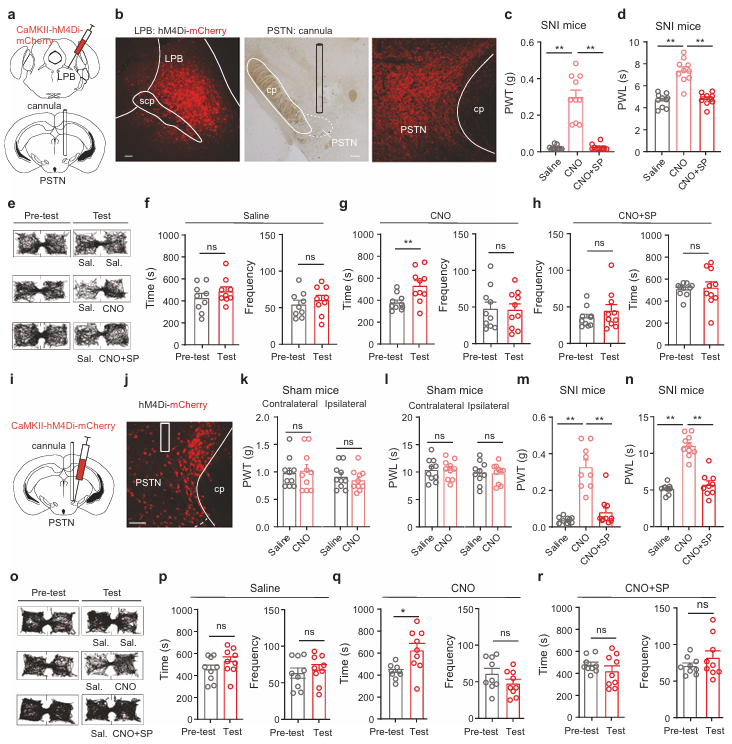
图7:PSTN内SP-NK1R信号在化学抑制LPB-PSTN投射所致镇痛中的作用。(a-b)将化学遗传学元件hM4Di转染入LPB神经元中,在PSTN埋置套管。(c-d)向PSTN注射生理盐水、CNO和CNO+SP后,观察SNI小鼠后足底机械痛和热痛阈值。(e-h)向PSTN注射生理盐水、CNO和CNO+SP后,观察条件位置偏好。(i-j)将化学遗传学元件hM4Di表达到PSTN神经元中,在PSTN埋置套管。(k-n)向PSTN中注射生理盐水和CNO后,观察sham和SNI小鼠损伤侧足底机械痛和热痛阈值变化。(o-r)向PSTN中注射生理盐水、CNO和CNO+SP,观察SNI小鼠的条件位置偏好情况。* P<0.05;** P<0.01;ns:无统计学差异。
总结
这项研究发现,在生理条件下,抑制和兴奋PSTN CaMKII神经元不会引起机械痛或热痛阈值的改变;在神经病理性疼痛条件下,PSTN神经元兴奋性升高,具体表现为伤害性刺激激活的神经元数量增加,对外周机械和热刺激,以及细胞对去极化刺激的反应更强;抑制PSTN CaMKII神经元或抑制阈上刺激激活的PSTN神经元可减轻SNI小鼠的痛敏反应。这些结果表明,PSTN神经元的过度活动参与了神经病理性疼痛的痛觉过敏。
这项研究还发现,在神经病理性疼痛中,PSTN神经元过度活跃,可能与LPB-PSTN投射的增强有关,并涉及SP-NK1R信号通路。抑制PSTN神经元和LPB-PSTN投射可减轻痛觉过敏和负性情绪,但这些作用可被向PSTN注射SP所抵消。这些结果表明,LPB-PSTN投射和PSTN中的SP-NK1R信号通路参与了神经病理性疼痛的中枢敏化。
总之,这项研究揭示了LPB-PSTN投射的增强是神经病理性疼痛的重要病理生理过程。逆转这种增强可以减轻痛觉过敏及相关的厌恶样行为。SP-NK1R信号通路在LPB-PSTN投射的痛觉调制中起着至关重要的作用。值得注意的是LPB-PSTN投射并不影响生理条件下的疼痛阈值。这些发现提示LPB-PSTN投射和PSTN中的NK1R是缓解神经病理性疼痛的潜在干预靶点。
肖诚教授、周春艺教授和新疆医科大学附属第三医院王天海主任医师为本文的共同通讯作者,硕士研究生饶芳与唐明鑫为本文的共同第一作者,硕士研究生杨航也参与了本研究的部分工作。
通讯作者介绍:
肖诚教授和周春艺教授为徐州医科大学麻醉学院江苏省麻醉与脑科学重点实验室麻醉与神经调控课题组负责人。主要研究方向为慢性疼痛、麻醉及相关神经精神疾病的神经环路机制。自2016年以来,团队运用多种慢性疼痛小鼠模型,结合光遗传学、化学遗传学、病毒示踪、离休和在体电生理、光纤成像、行为学检测、显微成像等技术,探讨了基底神经节、基底前脑和中脑多个核团调控慢性疼痛和负性情绪的神经环路机制。研究成果发表在Nat Commun、Adv Sci、PNAS、PLOS Biol和Cell Rep等杂志上,共30余篇。获得9项国家自然科学基金项目和多项省级课题资助。
参考文献
1. Rao F, Tang MX, Yang H, Wang TH, Zhou C, Xiao C. Enhanced substance P-NK1R signaling in the parabrachial–parasubthalamic pathway promotes hyperalgesia and affective aversion in neuropathic pain. Acta Pharmacol Sin, 2026. .
2. Ji, Y.W., et al., Plasticity in ventral pallidal cholinergic neuron-derived circuits contributes to comorbid chronic pain-like and depression-like behaviour in male mice. Nat Commun, 2023. 14(1): 2182.
3. Chiang, M.C., et al., Parabrachial Complex: A Hub for Pain and Aversion. J Neurosci, 2019. 39(42): 8225–8230.
4. Barik, A., et al., A Brainstem-Spinal Circuit Controlling Nocifensive Behavior. Neuron, 2018. 100(6): 1491-1503.e3.
5. Schank, J.R. and M. Heilig, Substance P and the Neurokinin-1 Receptor: The New CRF, in The Role of Neuropeptides in Addiction and Disorders of Excessive Consumption. 2017. p. 151–175.
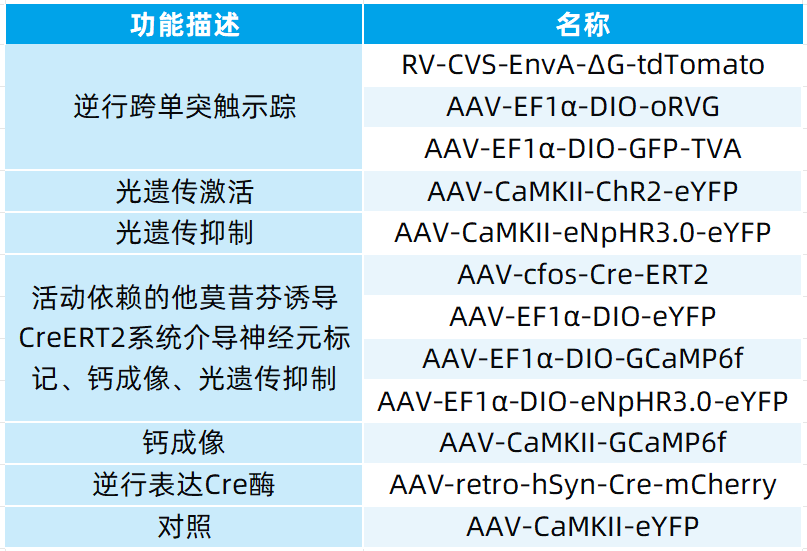
本文使用的病毒产品均来自枢密科技,列表如下:
如有相关需求,或了解更多产品服务,欢迎咨询我们!点击进入店铺,查看更多产品及服务
