- 移动端
武汉枢密脑科学技术有限公司品牌商
8 年
手机商铺
- NaN
- 0.6000000000000001
- 1.6
- 0.6000000000000001
- 3.6
武汉枢密脑科学技术有限公司
入驻年限:8 年
- 联系人:
枢先生
- 所在地区:
湖北 武汉市 江夏区
- 业务范围:
抗体、试剂、细胞库 / 细胞培养、技术服务、耗材、实验室仪器 / 设备
- 经营模式:
生产厂商 经销商
推荐产品
公司新闻/正文
IF=33.1【顶刊解读】Nat Biotechnol|AAV应用中容易被忽略的问题—AAV转录串扰:从意外到大载荷新策略
15 人阅读发布时间:2026-09-22 16:32
一、意外发现:浦肯野细胞中出现了不该有的表达
在很多人的理解中,不同AAV载体就像一辆辆相互独立的运输车:每个AAV携带自己的表达框,进入细胞,完成脱壳,然后表达自己的目的基因,即使同时注射两种AAV也似乎互不影响。但加州理工学院Viviana Gradinaru团队——工程化AAV衣壳(如血脑屏障穿透衣壳PHP.eB)和神经系统靶向递送领域的核心团队——2025年在线发表于《Nature Biotechnology》的一项研究揭示(跨AAV基因组的转录激活现象最早由Duan D等2000年报道,本研究正式命名为转录串扰并系统阐明其机制):当两个不同的AAV基因组共同进入一个细胞后,它们可能在细胞核内形成串联体,并发生跨基因组的转录串扰。
研究人员最初使用了两种AAV:第一种携带Ple155增强子和EGFP报告基因,能够在小鼠小脑浦肯野细胞中驱动较强表达;第二种携带mDLX增强子、minBG最小启动子和mRuby2报告基因,主要在前脑中间神经元中发挥作用,单独使用时不在浦肯野细胞表达。通过尾静脉给予AAV-PHP.eB衣壳(总剂量1×10¹² vg)后,按常理共注射后两者应各管各的,但研究人员观察到:两种AAV共同给药后,原本不会在浦肯野细胞中明显表达的mRuby2,却在该类细胞中出现了强表达。
进一步的载体截短实验显示,真正发挥作用的并不是第二个AAV自身的mDLX增强子,而是第一个AAV上的Ple155增强子。需要注意的是,这并不是两个AAV颗粒在细胞外或胞质中相互交流,真正发生作用的是它们脱壳后进入细胞核的载体基因组。
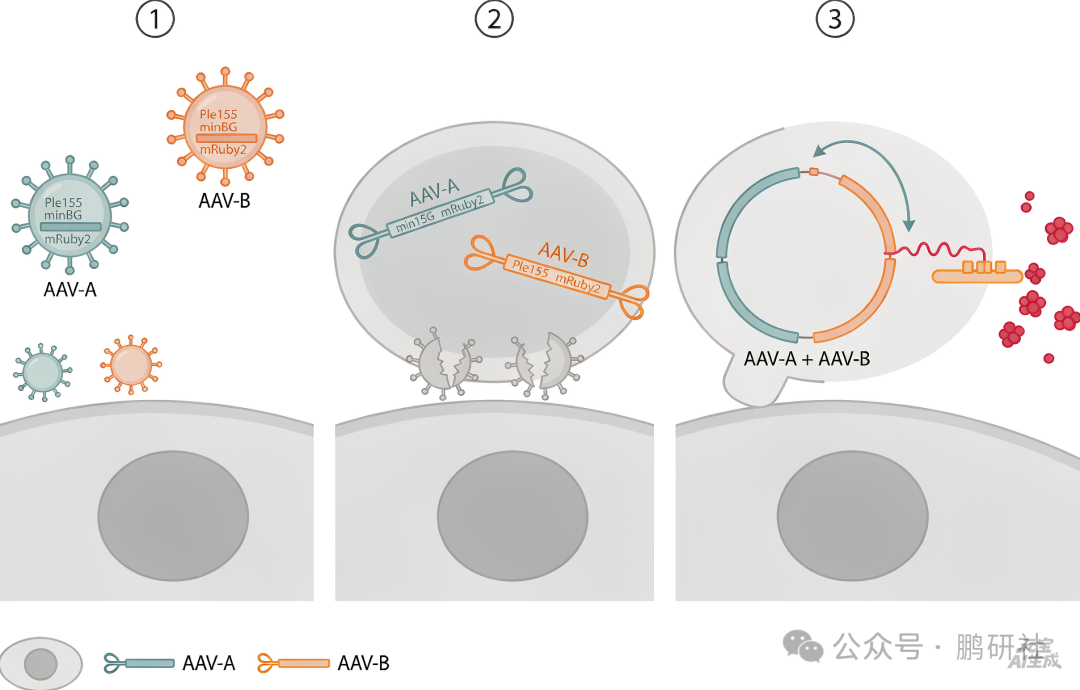
图1 转录串扰的意外发现与机制模型
(根据Coughlin GM, et al. Nat Biotechnol. 2026,Figure 1改绘)
二、机制:串联体把增强子和启动子拉到一起
AAV进入细胞核并脱壳后,其载体基因组并不一定永远保持为一条独立、线性的DNA。在宿主细胞DNA修复机制的参与下,AAV基因组可以发生环化,也可以由多个载体基因组相互连接,形成串联体(concatemer)。原本位于两个独立AAV中的遗传元件由此被连接到同一个DNA结构上——AAV-A携带细胞特异性增强子,AAV-B携带最小启动子和目的基因,两个基因组单独存在时增强子和启动子彼此分离,一旦形成串联体就进入同一个连续DNA结构,AAV-A上的增强子因此能够激活AAV-B上的启动子,进而提高目的基因表达。这就是转录串扰的核心机制。
研究团队随后测试了更多调控元件:Ple155分别与minBG、Ef1s、CMV以及SCP1四种最小启动子组合,均观察到串扰;9种具有不同神经细胞选择性的皮层增强子均在不同程度上增强了另一个AAV基因组上报告基因的表达。连同其他实验,论文一共测试了4种启动子和11种增强子,均观察到了转录串扰。这种现象也不只存在于小脑浦肯野细胞,这一普遍性验证使用了广泛型CMVe增强子配合SCP1启动子,混合AAV-PHP.eB(穿透血脑屏障)和AAV-MaCPNS2(外周神经嗜性)两种工程衣壳系统给药,在肝脏、背根神经节和近端结肠中也观察到了类似结果。不过,这并不意味着任何两种AAV共同给药都一定会发生明显串扰——两个载体能否共同进入同一细胞、进入的基因组数量、给药剂量、调控元件组合、串联体形成效率以及目的细胞的生物学状态,都会影响最终结果。
三、怎么看见:AAV-Zombie与SpECTr
要证明转录串扰与串联体有关,仅仅检测荧光蛋白表达还不够,研究人员需要直接观察AAV基因组在细胞中的位置和连接状态。为此,团队开发了两种空间基因组学工具。
第一种叫AAV-Zombie:在AAV基因组中加入噬菌体RNA聚合酶启动子和短条形码,组织固定后在原位加入相应的RNA聚合酶,将条形码转录,再通过HCR-FISH进行信号放大和检测,从而在不破坏组织空间结构的情况下定位细胞中的AAV基因组,单链和自互补AAV均可检测。
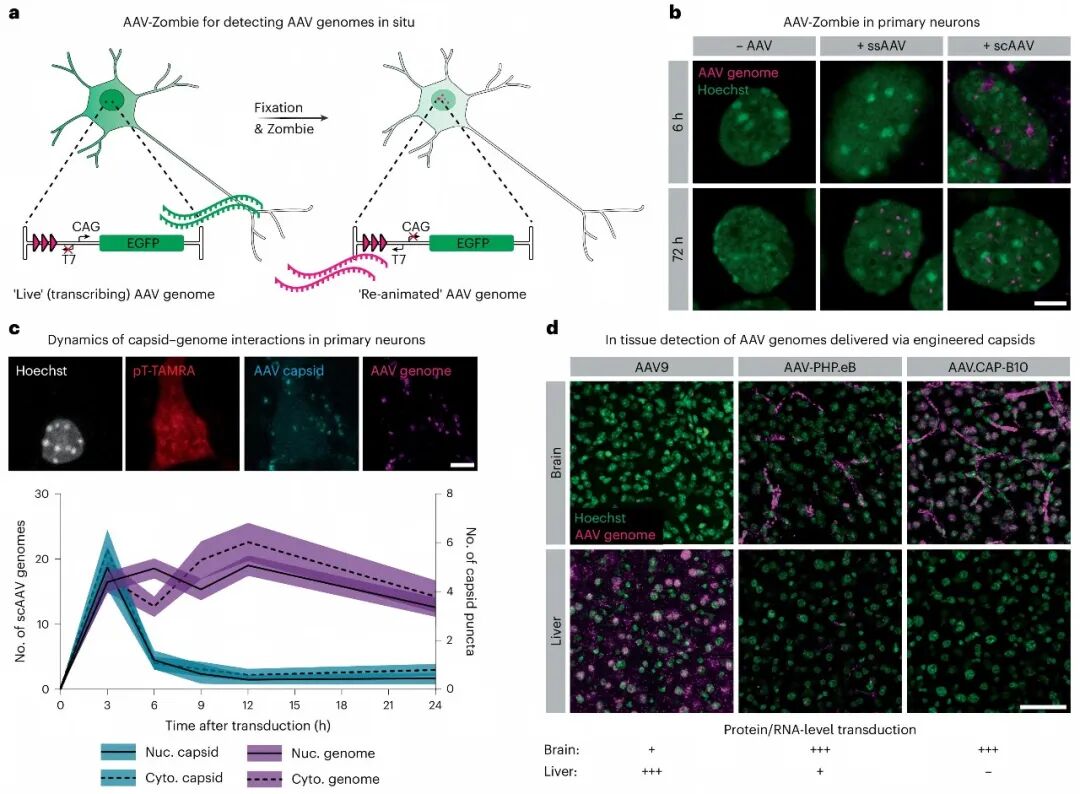
图2 AAV-Zombie原位定位单个AAV基因组
(图片来源:Coughlin GM, et al. Nat Biotechnol. 2026)
第二种叫SpECTr(SpECTr Enables AAV Concatemer Tracking):把噬菌体启动子和对应的条形码拆分到两个AAV基因组中,只有当两个AAV基因组形成特定方向的串联体后,启动子才能驱动条形码转录,因此检测到对应信号就代表细胞中出现了特定的AAV串联结构。
研究人员用AAV-DJ以1×10⁶ MOI转导原代神经元,在360小时(15天)内采集了14个时间点。AAV基因组首先进入细胞,转导后约12~24小时细胞核中的串联体信号开始升高,随后EGFP转录信号增强。在36~72小时时间窗口内,相比胞质AAV基因组数量和细胞核内总基因组数量,细胞核中的串联体数量与转基因表达的相关性更强:胞质基因组的R²约为0.087,核内总基因组约为0.317,核内串联体达到约0.541。
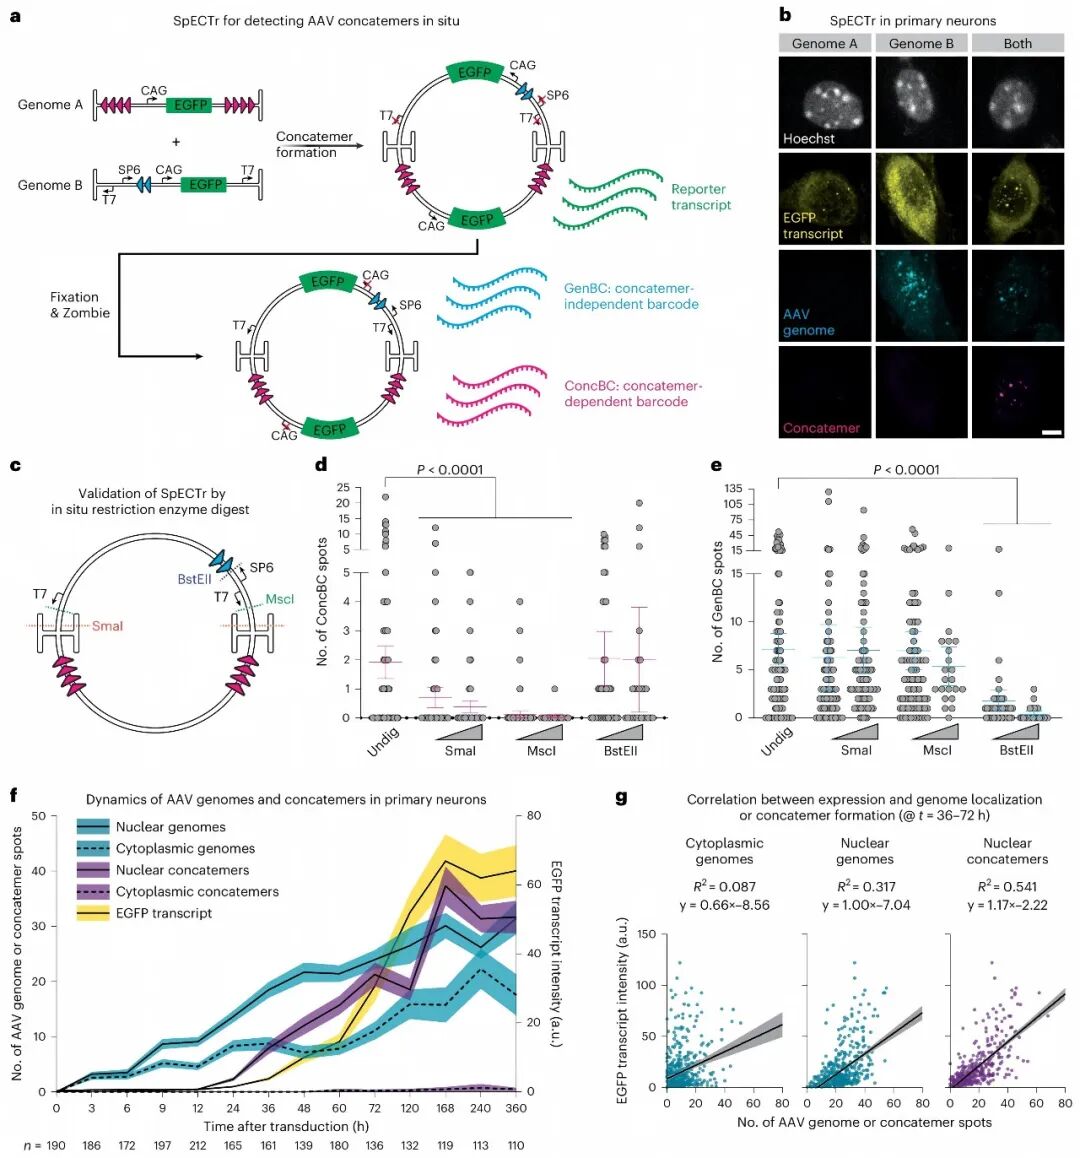
图3 SpECTr特异性检测AAV串联体
(图片来源:Coughlin GM, et al. Nat Biotechnol. 2026)
四、因果验证:基因组更多,表达不一定更强
为了进一步验证串联体与转录串扰的因果关系,研究人员使用了Prkdc功能缺失的SCID小鼠(C57BL/6背景),通过尾静脉注射AAV-PHP.eB,总剂量3×10¹¹ vg(高剂量会产生大量不可分辨的大斑点,干扰串联体计数)。Prkdc参与DNA双链断裂修复,既往研究表明这类小鼠形成AAV串联体的能力相对较低。结果很有意思:SCID小鼠浦肯野细胞内检测到的AAV基因组数量约为野生型小鼠的2.6倍,但串联体反而更少、体积也更小,转录串扰明显减弱。也就是说,检测到更多AAV基因组并不代表一定会有更强的基因表达——如果这些基因组没有形成能够支持调控元件相互作用的结构,转录串扰依然可能下降。
研究人员又使用另外两种细胞特异性增强子(hDLXI56i和mscRE4)进行了验证,同样观察到串联体减少伴随转录串扰下降。这些结果共同支持:AAV基因组串联化,是促进跨基因组转录串扰的重要机制。
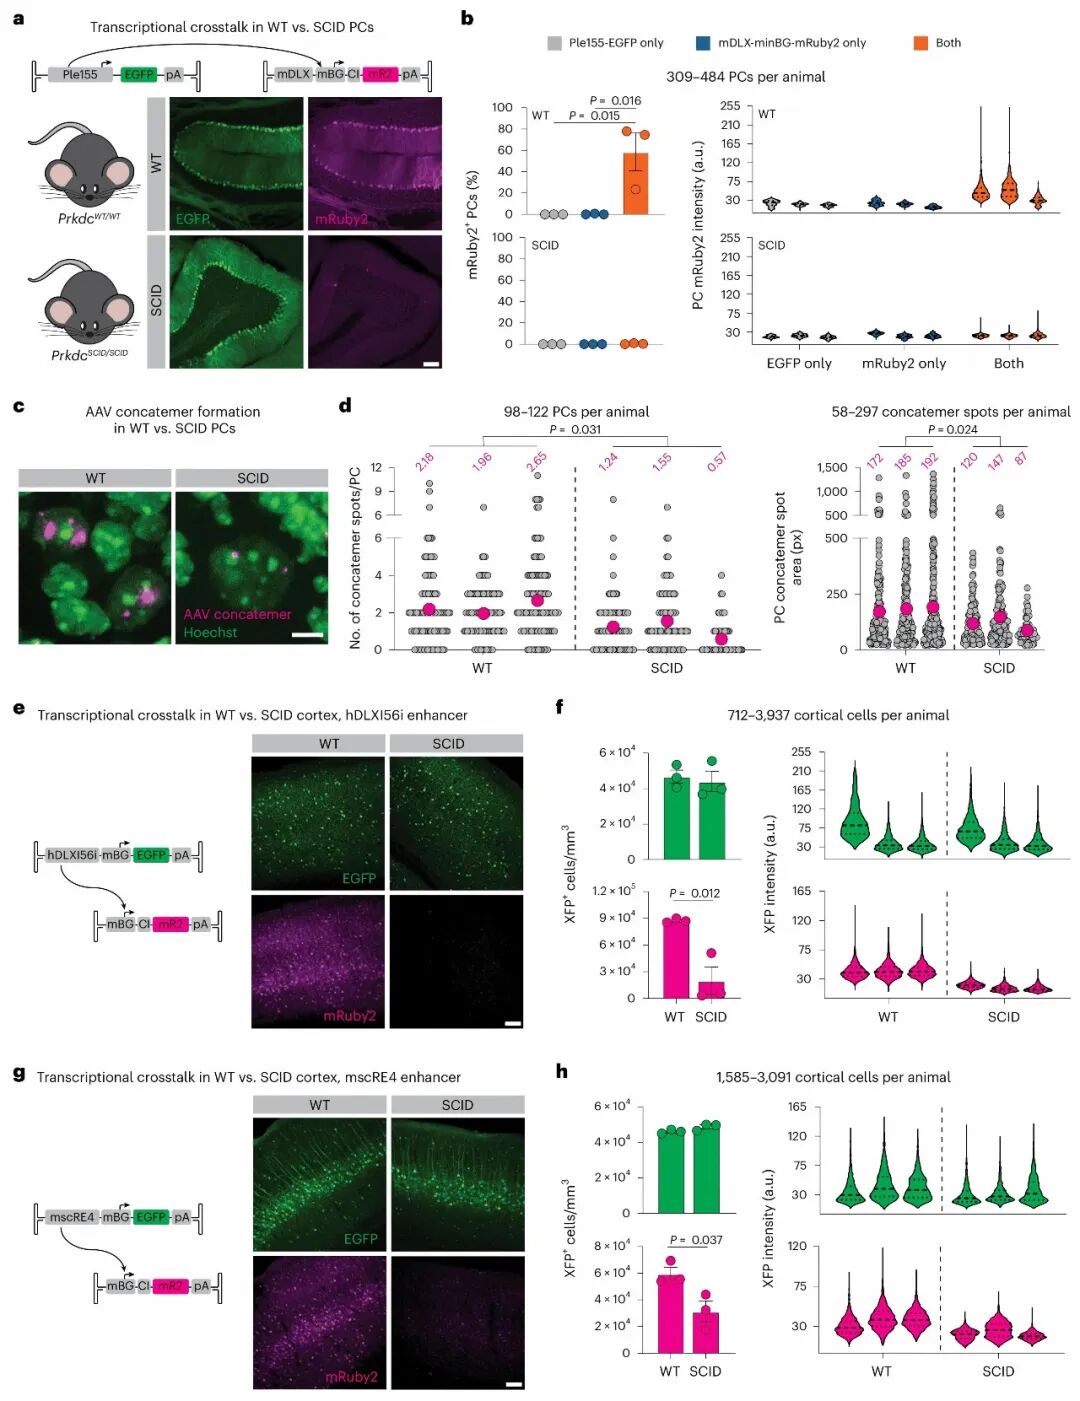
图4 SCID小鼠中串联体减少伴随转录串扰下降
(图片来源:Coughlin GM, et al. Nat Biotechnol. 2026)
五、风险:多AAV联用需要注意什么
这项研究首先提醒我们,多种AAV共同使用时不能简单假设每个表达框完全独立。
第一,混合AAV筛选可能受到干扰。为了节省动物并提高筛选效率,研究人员经常将多种带有不同增强子或条形码的AAV混合后共同注射。如果不同载体之间发生转录串扰,一个增强子可能激活另一个载体上的报告基因,最终观察到的细胞特异性就不一定完全来自该报告基因自身的调控元件。候选载体数量较少、单个载体剂量较高时风险更大;在包含大量候选载体、每种剂量较低的大型混合筛选中,这种影响可能有所降低。
第二,多AAV联合给药可能出现非预期表达。如果一个AAV携带组织或细胞特异性增强子,另一个AAV携带具有较强生物学活性的治疗基因或基因编辑工具,串扰可能改变目的基因的表达强度或细胞分布。
第三,双AAV评价不能只关注共同转导率。传统双AAV开发通常重点关注两个载体能否到达同一组织、能否进入同一个细胞、能否实现目的基因重组或功能恢复,这项研究提示还需要关注两个载体基因组进入细胞核后是否发生串联化、不同调控元件之间是否相互作用。
这并不代表现有双AAV策略都会出现严重串扰,也不能根据这项小鼠研究直接推断临床风险。但在多载体系统的开发和评价中,增加跨载体表达及非预期细胞表达的验证,可能具有重要意义。
六、应用与启示:从风险到工具
风险的另一面是新的工具。AAV的包装容量通常约为4.7 kb(含ITR),如果既要装入大型目的基因,又要加入较长的细胞特异性增强子、启动子和其他调控元件,很容易超过包装上限。传统办法是缩短启动子、缩小目的基因,或者使用双AAV进行mRNA或蛋白质反式剪接。这项研究提出了另一种思路:不必把大型增强子和目的基因装进同一个AAV。实验在Ai14报告小鼠(Rosa26-CAG-LSL-tdTomato)中进行——该小鼠基因组中tdTomato前有一个STOP序列,两侧各有一个loxP位点;SaCas9通过靶向loxP的sgRNA切割STOP并由NHEJ修复去除,tdTomato才得以表达,因此tdTomato阳性细胞比例直接反映编辑效率,研究人员将约1.65 kb的Ple155增强子放入一个AAV,将约3.2 kb的SaCas9和最小调控元件放入另一个AAV(均包装于AAV-PHP.eB衣壳,尾静脉给药,总剂量1×10¹² vg),两个载体共同进入浦肯野细胞并形成串联体后,Ple155通过转录串扰增强了另一个AAV上的SaCas9表达——与无增强子对照相比,CMVe广泛组在肝脏编辑效率提高31倍、皮层17倍、小脑非浦肯野细胞9倍、浦肯野细胞107倍;而Ple155串扰组在浦肯野细胞中的编辑效率提高了约177倍,甚至高于CMVe组,肝脏、大脑皮层及其他小脑细胞中却未观察到显著的编辑增加。需要说明的是,这并不是让单个AAV突破4.7 kb的物理包装极限,而是把大型远端调控元件和目的基因表达框分配到两个AAV中,再利用细胞核内的串联化和增强子-启动子作用完成调控。
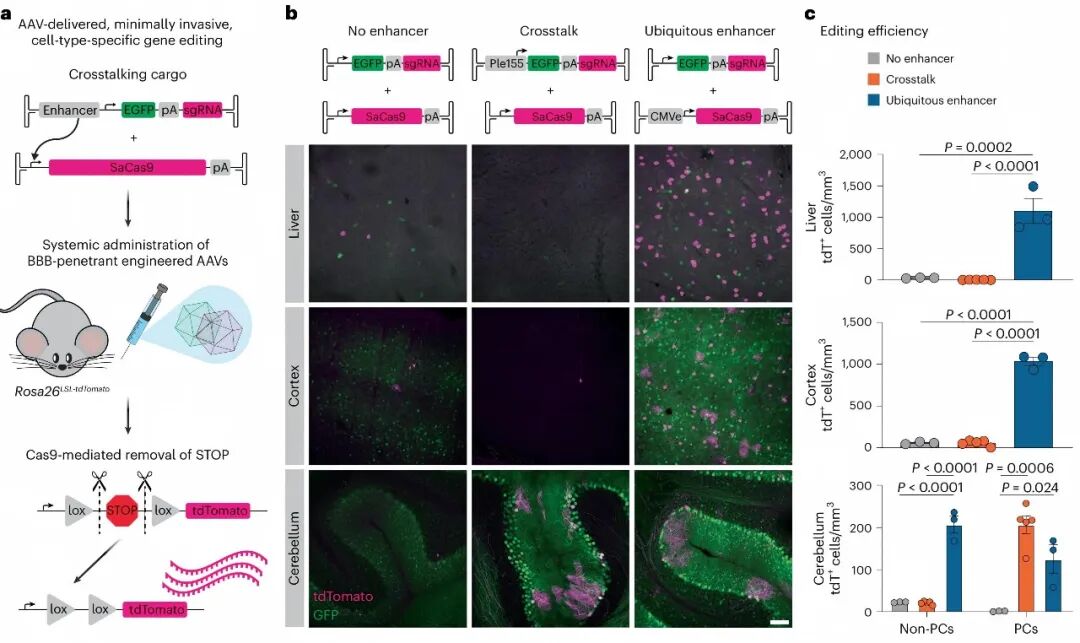
图5 利用转录串扰实现浦肯野细胞特异性SaCas9编辑
(图片来源:Coughlin GM, et al. Nat Biotechnol. 2026)
为了验证这一系统能否产生真实的生物学效应,研究人员在野生型C57BL/6J小鼠中进一步靶向了在大脑中广泛表达的Cacna1a基因,通过AAV-PHP.eB尾静脉给药(总剂量1×10¹² vg)。广泛敲除可导致共济失调、肌张力障碍、小脑变性、失神性癫痫,严重者可早期致死。研究人员分别使用广泛表达增强子和Ple155串扰策略驱动SaCas9,两种策略都能降低小脑中的Cacna1a信号,并产生运动减少、运动协调障碍、肢体力量下降和步态障碍。广泛表达组在给药后3周即出现显著体重下降,而PC特异性串扰组直到5周才出现体重差异,说明细胞特异性表达确实减轻了全身副作用。但广泛表达组出现了明显的皮层棘慢波放电,而串扰限制组整体上没有显著增加——不过少数动物仍有轻微的棘慢波增加,可能与minBG最小启动子的基础泄漏表达有关。这说明转录串扰能够提高细胞选择性,但并不等于零泄漏。
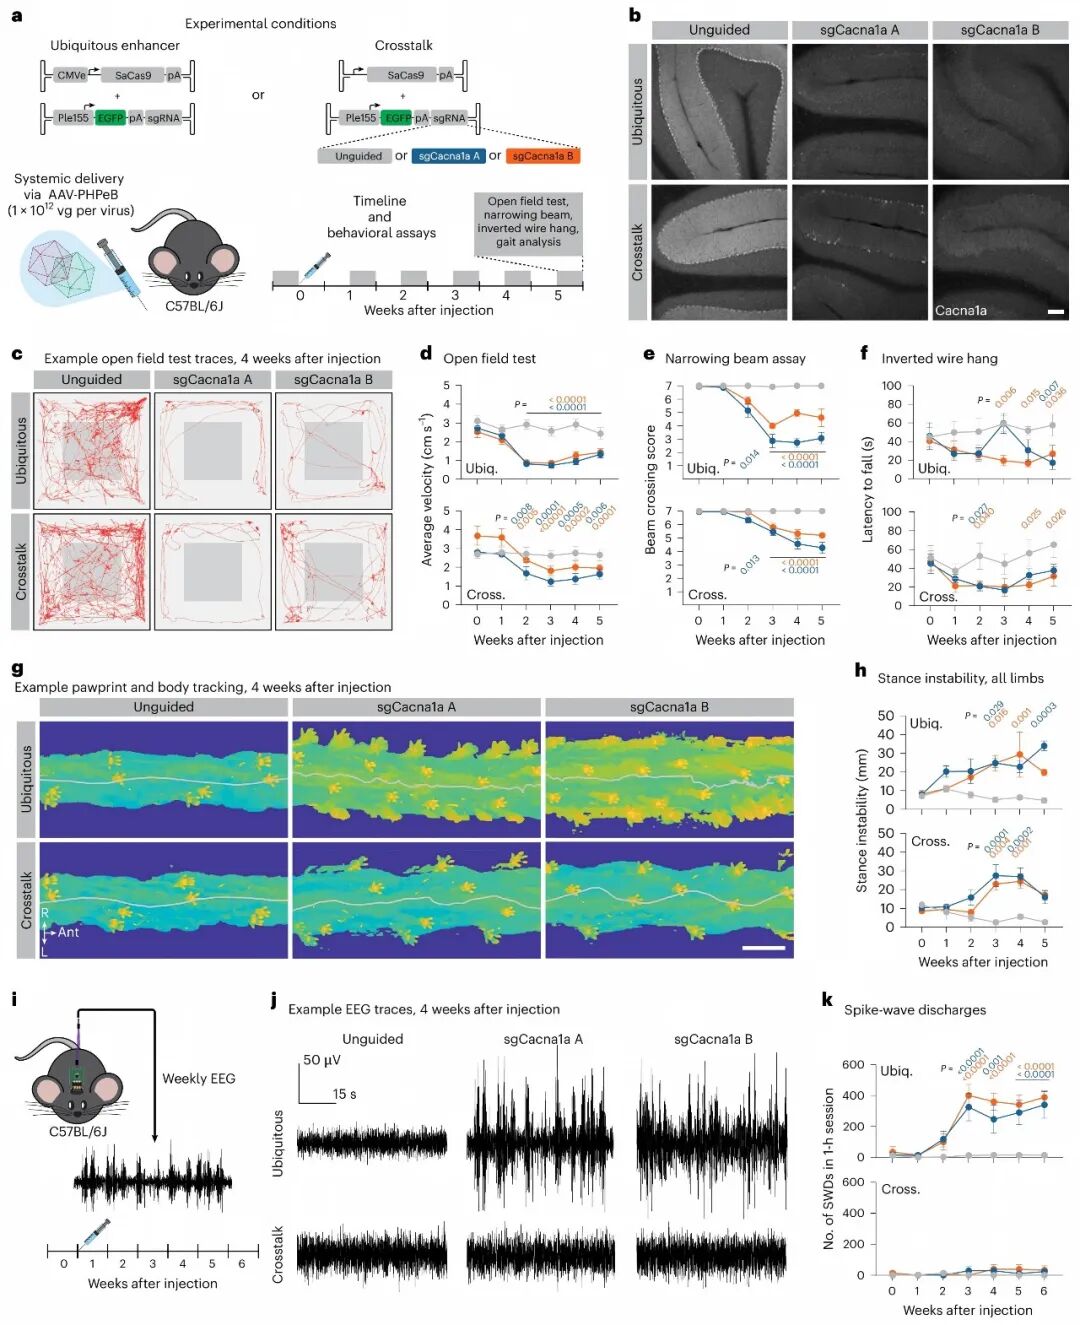
图6 Cacna1a靶向与表型验证
(图片来源:Coughlin GM, et al. Nat Biotechnol. 2026)
过去理解AAV开发主要回答三个问题:衣壳决定去哪里,启动子和增强子决定在哪些细胞表达,目的基因决定产生什么功能。这项研究增加了第四个问题:多个AAV基因组进入细胞核后会如何相互作用——基因组是否完成第二链合成、是否环化、是否形成串联体、串联体由哪些基因组组成、不同调控元件之间是否发生跨基因组作用,都可能影响最终表达。对于科研实验,这意味着混合AAV筛选和多载体共同转导需要设置更严格的单载体及组合对照;对于载体开发,双AAV系统的评价不能只检测两个载体是否同时进入目的细胞,还要关注潜在的跨载体表达和非预期细胞表达;对于大载荷递送,这项研究提供了把大型调控元件与目的基因分开包装、再利用AAV串联体实现细胞特异性表达的新路线。
作者在补充材料中列举了11种可能受益于这一策略的适应症,包括囊性纤维化(CFTR,4,440 bp)、Duchenne肌营养不良、CDKL5缺乏症、SYNGAP1相关智力障碍、Wilson病(ATP7B,4,410 bp)等——这些基因长度均接近4.7 kb包装上限,且对细胞特异性表达要求高。当然,目前这仍是一项以小鼠为主的概念验证研究,使用了工程化血脑屏障穿透AAV和相对较高的载体剂量,部分早期筛选实验的动物数量也较少。这种策略在非人灵长类、人体细胞以及临床相关剂量下能否保持相同的效率和特异性,还需要进一步验证。
如有相关需求,或了解更多产品服务,欢迎咨询我们!点击进入店铺,查看更多产品及服务
